
4. Sensazione e percezione
Apertura — Il mondo esterno e la realtà che viviamo
Quando si entra in una stanza poco illuminata dopo essere rimasti al sole, per alcuni istanti sembra impossibile distinguere gli oggetti. Poco dopo emergono contorni e colori: non è cambiata la disposizione dei mobili, ma sono cambiati i sistemi con cui il corpo raccoglie e interpreta la luce. In una conversazione affollata, invece, la voce di una persona acquista improvvisamente risalto, pur essendo immersa nelle stesse onde sonore che raggiungono tutti i presenti. Questi fenomeni suggeriscono che ciò che percepiamo non sia una copia istantanea del mondo, bensì il risultato di un'elaborazione svolta da organi sensoriali, circuiti nervosi, esperienza e attenzione.
La percezione è normalmente efficace: permette di attraversare una strada, riconoscere una voce, afferrare un bicchiere e orientarsi senza calcolare consapevolmente tutte le grandezze fisiche coinvolte. Tuttavia è anche selettiva, sensibile al contesto e talvolta fallibile. Un oggetto può sembrare più grande accanto a oggetti piccoli; un suono può essere attribuito alla posizione di un'immagine che si muove; un odore resta rilevabile anche quando non lo notiamo più. Il compito della psicologia scientifica non consiste nel contrapporre una percezione “falsa” a una realtà sempre “vera”, ma nello spiegare in quali condizioni il sistema percettivo produce rappresentazioni affidabili e quando emergono discrepanze prevedibili.
In questo capitolo seguiremo i segnali dall'ingresso nei recettori alla loro organizzazione nel cervello. La spiegazione attraverserà livelli diversi: proprietà fisiche di luce e suono, meccanismi cellulari della trasduzione, processi cognitivi di riconoscimento e situazioni quotidiane in cui i sensi collaborano. La domanda ricorrente sarà come l'organismo trasformi informazioni parziali e rumorose in un'esperienza sufficientemente stabile per guidare l'azione.
Obiettivi formativi
Al termine del capitolo il lettore dovrà saper distinguere sensazione e percezione, illustrare i meccanismi principali della trasduzione, interpretare soglie e misure psicofisiche, analizzare il rapporto tra percezione e attenzione, ricostruire le vie visive e uditive, confrontare i diversi sistemi somatosensoriali e chimici, spiegare le basi dell'equilibrio e della propriocezione e valutare criticamente modelli di inferenza percettiva, illusioni e risultati sperimentali classici.
4.1 Dalla stimolazione alla rappresentazione: che cosa significa percepire
Per sensazione si intende, in senso generale, il rilevamento e la prima elaborazione di un evento fisico o chimico da parte dei sistemi sensoriali. La percezione indica invece i processi grazie ai quali tali segnali vengono organizzati e interpretati, assumendo la forma di oggetti, eventi e caratteristiche significative dell'ambiente o del corpo. Questa distinzione è utile sul piano didattico, ma non corrisponde a una separazione netta fra un apparato periferico passivo e un cervello attivo. Già nella retina o nella coclea i segnali vengono filtrati e trasformati; inoltre attenzione e aspettative possono modificare alcuni stadi dell'elaborazione sensoriale.
I recettori sensoriali non rispondono tutti allo stesso tipo di energia. I fotorecettori della retina sono sensibili alla luce; le cellule ciliate dell'orecchio interno si deformano sotto l'effetto di vibrazioni meccaniche; differenti recettori cutanei rilevano pressioni e stiramenti; particolari proteine presenti in cellule olfattive e gustative interagiscono con molecole chimiche. La trasduzione è il passaggio attraverso cui uno stimolo fisico o chimico modifica l'attività di una cellula recettrice e viene convertito in un segnale biologico. La risposta può iniziare con un cambiamento del potenziale di membrana e proseguire attraverso la comunicazione sinaptica; non tutte le cellule recettrici, tuttavia, producono direttamente potenziali d'azione.
È essenziale distinguere l'energia dello stimolo dall'esperienza che ne deriva. Le oscillazioni di pressione nell'aria non possiedono di per sé una qualità soggettiva chiamata “melodia”; il sistema uditivo analizza regolarità temporali e spettrali che possono dare origine a un'esperienza musicale. Analogamente, le lunghezze d'onda della luce non contengono letteralmente il colore percepito: il colore dipende dalla risposta relativa di differenti meccanismi visivi e da operazioni centrali. Questa osservazione non significa che l'esperienza sia arbitraria; significa che ogni esperienza sensoriale è una relazione fra proprietà del mondo, struttura dell'organismo e condizioni dell'osservazione.
Si parla di stimolo distale per indicare l'oggetto o l'evento nell'ambiente, e di stimolo prossimale per indicare l'energia che raggiunge effettivamente un organo recettore. Una tazza è un oggetto distale; la distribuzione della luce che forma un'immagine sulla retina è lo stimolo prossimale per la visione. Il secondo è limitato e spesso ambiguo: un oggetto tridimensionale produce una proiezione bidimensionale e due scene differenti possono produrre immagini retiniche simili. Parte del lavoro percettivo consiste dunque nel risolvere questo problema inverso, stimando da effetti osservabili quali oggetti possano averli prodotti.
Un altro principio è la codificazione neurale: il sistema nervoso rappresenta caratteristiche degli stimoli attraverso variazioni nel numero, nella temporizzazione e nella distribuzione spaziale dei segnali. L'intensità di uno stimolo non dipende semplicemente dall'ampiezza del singolo potenziale d'azione, che in condizioni tipiche ha proprietà “tutto o nulla”; può riflettersi piuttosto nella frequenza di scarica e nel reclutamento di popolazioni neurali. La specificità delle vie di trasmissione aiuta a interpretare la modalità sensoriale coinvolta, mentre la variazione di attività all'interno di una via contribuisce a codificarne le proprietà.
In ogni modalità sensoriale si incontra una tensione fra sensibilità e selettività. Essere estremamente sensibili a stimoli deboli può essere utile, ma aumenta il rischio di reagire al rumore ambientale o interno; ignorare parte del rumore migliora la stabilità, ma può far perdere eventi importanti. L'organismo deve inoltre dare priorità a informazioni rilevanti per i propri obiettivi. L'attenzione, la motivazione, lo stato fisiologico e l'apprendimento partecipano a questa regolazione, senza annullare i vincoli imposti dai sistemi recettoriali.
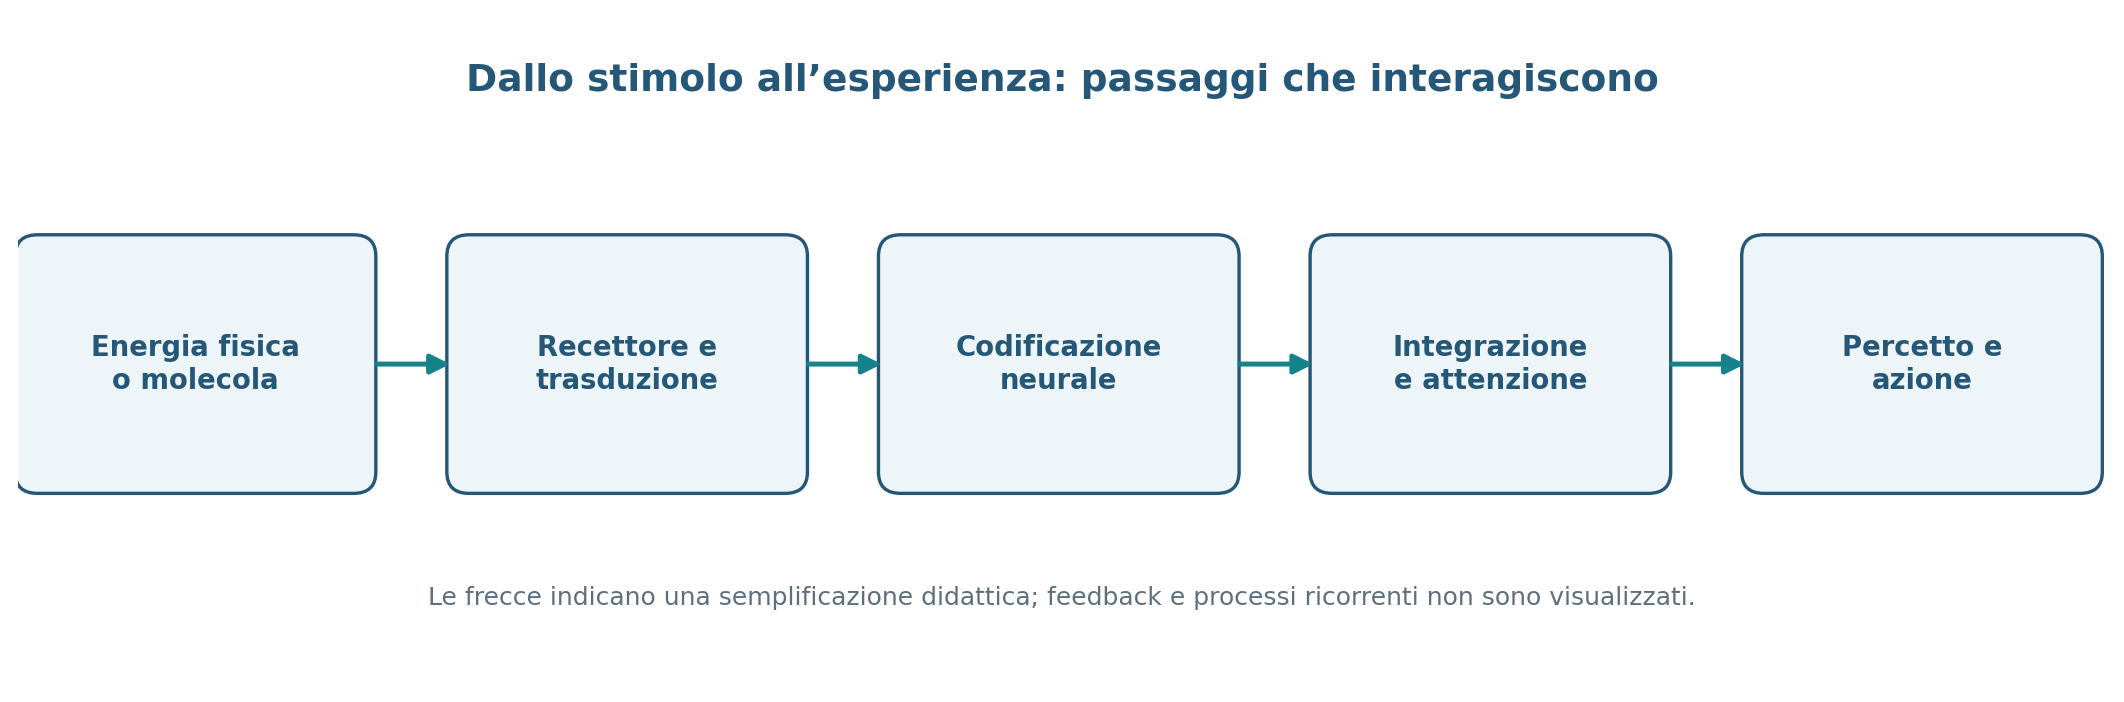
Tabella 4.1 — Confronto tra sensazione e percezione
Dimensione | Sensazione | Percezione |
|---|---|---|
Oggetto | Rilevamento e prima elaborazione dello stimolo | Organizzazione e interpretazione dell’informazione |
Esempio | Risposta retinica a un contrasto | Riconoscimento di una porta |
Dato usato | Risposta recettoriale o soglia | Identificazione, categorizzazione, azione |
Limite | Non è completamente «pura» | Non è completamente indipendente dallo stimolo |
4.2 Psicofisica: soglie, intensità e teoria della rilevazione del segnale
La psicofisica studia le relazioni tra variazioni fisiche degli stimoli e risposte di persone o animali. Il suo interesse storico deriva dal tentativo di trasformare giudizi apparentemente soggettivi in osservazioni quantitative. In un esperimento uditivo, per esempio, si può presentare un tono di intensità diversa e chiedere ogni volta se sia stato udito. Al termine non si ottiene una barriera perfettamente rigida fra “percepito” e “non percepito”, ma spesso una curva che esprime la probabilità di una risposta in funzione dell'intensità dello stimolo.
La soglia assoluta è definita operativamente come il livello di stimolazione rilevato secondo un criterio prestabilito, spesso nel 50% delle prove in una particolare procedura. Non è una costante immutabile dell'organismo: dipende da adattamento, rumore, attenzione, caratteristiche dello stimolo e criteri di risposta. Nella soglia differenziale, invece, interessa la minima differenza tra due stimoli che un osservatore riesce a discriminare con una determinata accuratezza. Il termine classico differenza appena percepibile non va interpretato come un salto improvviso nella coscienza: anche qui si tratta normalmente di una prestazione probabilistica.
Ernst Heinrich Weber osservò regolarità nel modo in cui una differenza fisica diventa distinguibile. In molti intervalli di intensità la variazione minima rilevabile cresce approssimativamente in proporzione allo stimolo di riferimento. La relazione è espressa, in forma semplificata, come ΔI / I = k, dove I è l'intensità di riferimento, ΔI la variazione distinguibile e k una costante che cambia con la modalità, con la procedura e con le condizioni. Se, in un esempio puramente ipotetico, una differenza pari a 2 unità risultasse distinguibile partendo da 40, con lo stesso rapporto k = 0,05 una differenza pari a 5 unità sarebbe prevedibile partendo da 100. Non si tratta di dati sperimentali né di una legge universale valida senza eccezioni.
Gustav Theodor Fechner propose un'analisi della crescita della sensazione basata su passaggi percettivi supposti equivalenti; da tale programma deriva una formulazione logaritmica del rapporto fra grandezza fisica e grandezza psicologica. Modelli successivi, fra cui la legge di potenza associata a S. S. Stevens, hanno mostrato che descrizioni differenti possono adattarsi a compiti e modalità differenti. In forma generale, una relazione di potenza può essere scritta come P = aI^b, dove P rappresenta una stima percettiva, a un fattore di scala e b un esponente stimato empiricamente. Nessuna delle due formulazioni elimina il bisogno di specificare come siano state ottenute le risposte e in quali condizioni il modello funzioni.
Un punto cruciale emerge quando si chiede a un osservatore di decidere se sia presente un segnale debole in mezzo al rumore. Una risposta “sì” può dipendere tanto dalla sensibilità percettiva quanto dalla propensione ad assumersi il rischio di un falso allarme. La teoria della rilevazione del segnale separa, entro determinati assunti, la capacità di distinguere due distribuzioni di evidenza dal criterio utilizzato per decidere. Le quattro possibilità sono: segnale presente e risposta positiva (rilevazione corretta), segnale presente e risposta negativa (omissione), segnale assente e risposta positiva (falso allarme), segnale assente e risposta negativa (rifiuto corretto).
Consideriamo una simulazione ipotetica composta da cento prove con segnale e cento senza segnale. Un osservatore produce 80 rilevazioni corrette, 20 omissioni, 30 falsi allarmi e 70 rifiuti corretti. Il tasso di rilevazione è 80/100 = 0,80; quello dei falsi allarmi è 30/100 = 0,30. Se il criterio viene reso più permissivo, potrebbero crescere sia le rilevazioni corrette sia i falsi allarmi. La sensibilità non coincide quindi con la sola percentuale di risposte positive. Sotto un modello gaussiano con distribuzioni di uguale varianza, un indice comune è d′ = z(H) − z(F), dove H indica il tasso di rilevazione, F quello dei falsi allarmi e z la trasformazione in quantile normale standard. Il modello ha limiti e richiede cautela quando i tassi sono pari a zero o uno.
Queste distinzioni aiutano a comprendere situazioni professionali e quotidiane. Un radiologo che esamina immagini sospette, un addetto alla sicurezza che osserva un monitor e una persona che ascolta un segnale in una stazione rumorosa affrontano tutti, con conseguenze e contesti diversi, un problema di decisione in condizioni di incertezza. La scelta del criterio non è sempre un errore: può riflettere il diverso costo attribuito a una omissione o a un falso allarme. Per interpretare le prestazioni bisogna allora considerare la matrice degli errori e i loro costi, non soltanto il numero di risposte giudicate corrette.
Metodi psicofisici: come si ottiene davvero una soglia
Il risultato di una ricerca psicofisica dipende in modo rilevante dalla procedura impiegata. Nel metodo degli stimoli costanti, lo sperimentatore seleziona in anticipo una serie di intensità, le presenta più volte e in ordine controllato, quindi costruisce per ciascuna il tasso di risposte. Questo approccio produce una curva di prestazione, ma richiede numerose prove, soprattutto quando si desidera stimare una soglia con precisione. In un esperimento sulla discriminazione visiva occorre decidere anche quanto dura lo stimolo, se il partecipante lo osserva con uno o due occhi, quale luminosità possiede lo sfondo e come vengono controllati i tempi fra le prove.
Nei metodi adattivi, le intensità proposte variano sulla base delle risposte precedenti. Una procedura detta staircase, o scala adattiva, può rendere lo stimolo meno intenso dopo alcune risposte corrette e più intenso dopo un errore, concentrando una parte delle prove vicino alla regione informativa della curva. Il valore verso cui converge dipende dalle regole adottate: non tutte le scale stimano la medesima percentuale di accuratezza. Per questo due soglie pubblicate con lo stesso nome non sono automaticamente confrontabili se i criteri sperimentali differiscono. È necessario riportare durata, condizioni, metodo e incertezza della stima.
Un altro compito frequente è la scelta forzata: anziché chiedere soltanto se un segnale sia presente, si domanda in quale fra due intervalli sia comparso. Il ricercatore può così ridurre alcuni problemi legati alle risposte “sì” o “no” e al criterio esplicito dell'osservatore. Tuttavia la scelta forzata non elimina tutte le distorsioni: restano possibili cambiamenti di attenzione, preferenze per un intervallo, apprendimento e affaticamento. Nella pratica moderna, progettare un buon esperimento significa valutare in anticipo anche il numero di prove, i possibili effetti d'ordine e gli strumenti statistici con cui si stimeranno soglia e sensibilità.
Il criterio e i costi degli errori: esempio numerico guidato
Riprendiamo i dati ipotetici presentati in precedenza. Con 80 rilevazioni corrette su 100 prove con segnale e 30 falsi allarmi su 100 prove senza segnale, si ottengono H = 0,80 e F = 0,30. Nel modello gaussiano a varianze uguali, il quantile normale di 0,80 vale circa 0,84, quello di 0,30 circa −0,52: la differenza produce d′ ≈ 1,37. Questa operazione è un calcolo su numeri inventati, non una stima ricavata da una ricerca pubblicata. Se un secondo osservatore producesse H = 0,70 e F = 0,20, non basterebbe notare che rileva meno bersagli: potrebbe aver adottato un criterio più conservativo. Calcolare entrambe le misure permette un confronto più sensato, pur subordinato alle ipotesi del modello.
Il valore d′ descrive una separazione statistica delle distribuzioni ipotizzate di evidenza, non una percentuale di capacità mentale. Persino una sensibilità elevata non garantisce assenza di errori nella vita reale, perché i segnali cambiano e le condizioni non riproducono sempre quelle del laboratorio. Nei problemi di sicurezza, la scelta del criterio richiede spesso di valutare separatamente l'effetto di un falso allarme e quello di una mancata rilevazione, insieme ai possibili interventi di progettazione che potrebbero migliorare l'informazione disponibile a tutti gli osservatori.
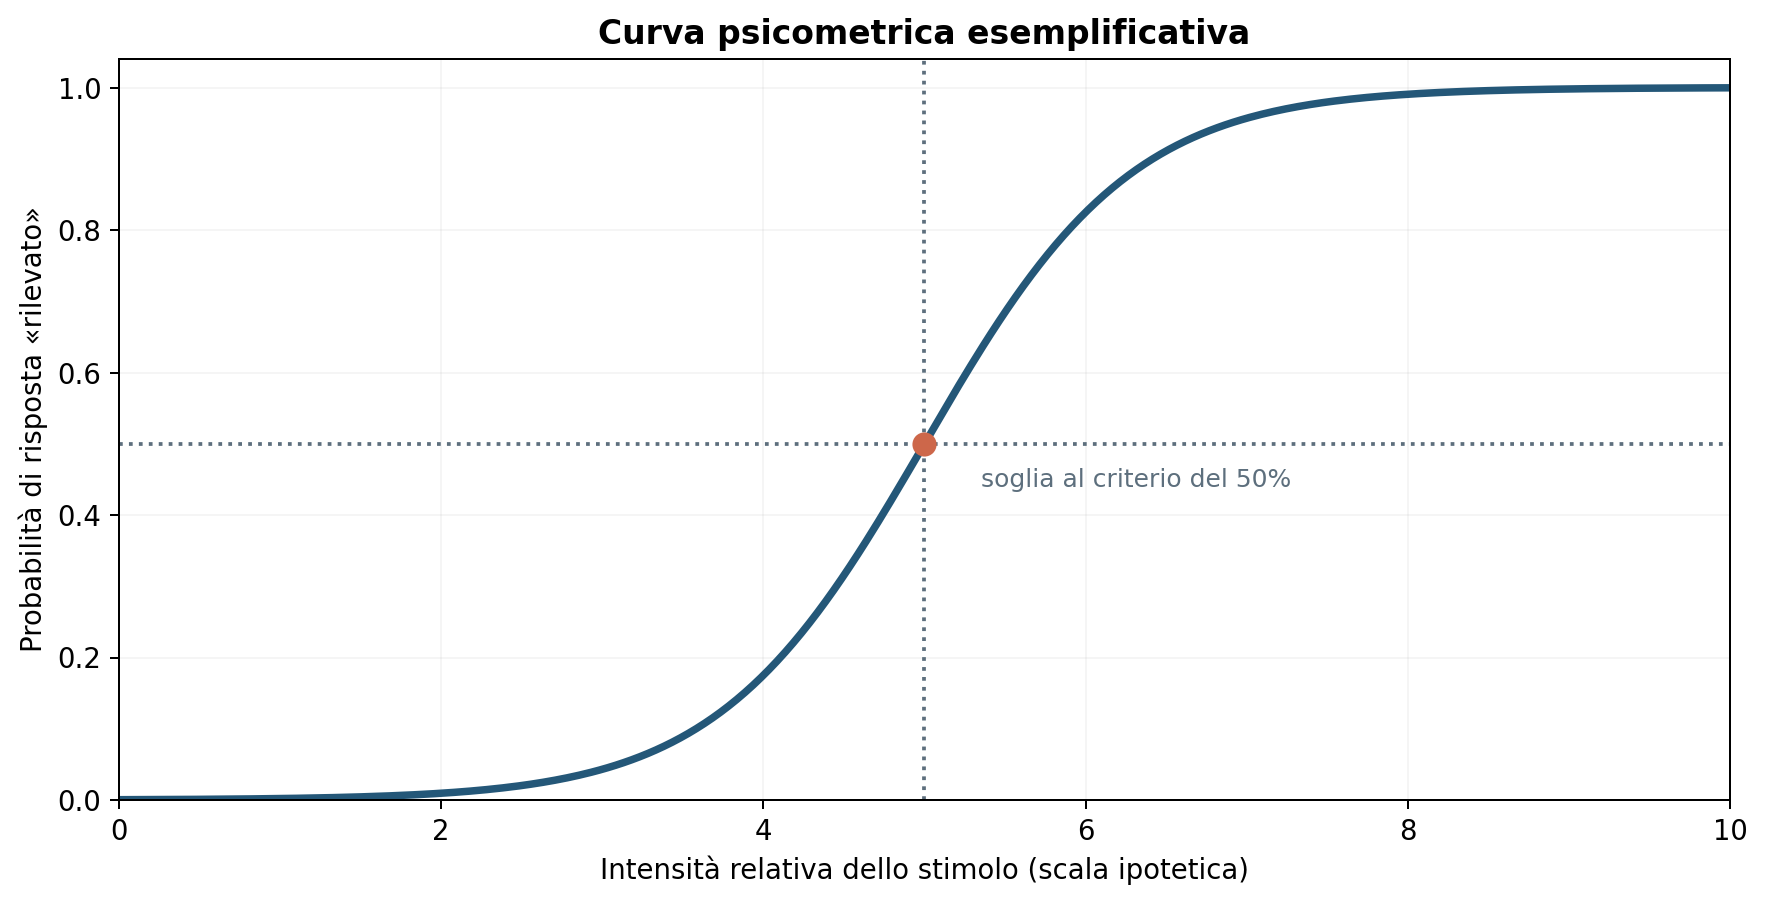
Tabella 4.2 — Esiti possibili nella rilevazione del segnale
Condizione | Risposta «sì» | Risposta «no» |
|---|---|---|
Segnale presente | Rilevazione corretta | Omissione |
Segnale assente | Falso allarme | Rifiuto corretto |
Misura utile | Tasso di rilevazioni; falsi allarmi | Tasso di omissioni; rifiuti corretti |
4.3 Adattamento sensoriale, aspettative e inferenza percettiva
Il mondo fisico cambia continuamente, ma una parte degli stimoli resta relativamente costante. L'adattamento sensoriale descrive i cambiamenti della risposta a una stimolazione persistente o ripetuta: un odore inizialmente intenso può diventare meno evidente; le condizioni di illuminazione modificano lentamente la sensibilità visiva; un contatto cutaneo stabile può perdere salienza. I meccanismi non sono identici in tutte le modalità. Alcune modificazioni riguardano proteine e cellule recettrici, altre circuiti più centrali, apprendimento o distribuzione dell'attenzione. Per questa ragione l'adattamento non equivale semplicemente a “stancarsi” o a smettere di sentire.
L'adattamento visivo al buio costituisce un esempio istruttivo. Entrando in un ambiente scarsamente illuminato dopo l'esposizione a luce intensa, la sensibilità migliora con il passare dei minuti grazie a processi che coinvolgono fotopigmenti e circuiti retinici. Coni e bastoncelli hanno proprietà differenti: i coni sostengono la visione cromatica e ad alta risoluzione nelle condizioni appropriate, mentre i bastoncelli consentono una sensibilità elevata in condizioni di poca luce, a fronte di una discriminazione cromatica limitata. Il progressivo miglioramento non si esaurisce in un unico passaggio né avviene allo stesso ritmo per tutti.
La percezione dipende inoltre da elaborazioni che procedono dalle informazioni sensoriali verso rappresentazioni più complesse, spesso chiamate processi dal basso verso l'alto o bottom-up. Tuttavia i sistemi percettivi utilizzano anche esperienza precedente, contesto e obiettivi per interpretare segnali incompleti: è la famiglia dei processi dall'alto verso il basso, o top-down. Quando un testo presenta una lettera parzialmente coperta, il significato della frase può facilitare il riconoscimento; ciò non implica che il cervello sostituisca indiscriminatamente qualunque evidenza con una supposizione.
Una formulazione influente considera la percezione come un problema di inferenza probabilistica. In termini bayesiani, la probabilità di una possibile causa dopo aver osservato un dato è proporzionale al prodotto tra la probabilità del dato sotto quell'ipotesi e la probabilità iniziale dell'ipotesi: P(H|D) ∝ P(D|H)P(H). Le idee alla base sono intuitive. Se un oggetto distante appare piccolo sulla retina, il cervello può integrare l'informazione con altri indizi relativi alla distanza e alla dimensione familiare degli oggetti. Il calcolo bayesiano è un linguaggio formale utile per descrivere questa integrazione, non una prova che singole persone eseguano consapevolmente equazioni numeriche.
L'inferenza percettiva può diventare sistematicamente erronea quando gli indizi suggeriscono una situazione diversa da quella reale. Numerose illusioni geometriche sfruttano appunto regolarità che nella vita quotidiana funzionano spesso bene. Nel caso di linee uguali circondate da configurazioni differenti, la dimensione apparente può cambiare per effetto del contesto. Non sempre una singola spiegazione, per esempio “l'esperienza della profondità”, basta a rendere conto di tutte le illusioni: i risultati dipendono dal disegno, dalla procedura e dal tipo di giudizio richiesto.
Si deve infine evitare un equivoco: chiamare “predittivo” il cervello non significa che esso costruisca liberamente una realtà privata sganciata dagli stimoli. I modelli di codifica predittiva propongono che alcune reti confrontino segnali ricevuti e previsioni, aggiornandole attraverso errori di predizione. Questi modelli hanno generato ricerche feconde, ma differiscono per formalizzazione e grado di conferma; non autorizzano a presentare un'unica architettura computazionale come spiegazione definitiva di tutti i sensi. L'evidenza percettiva, i movimenti esplorativi e le informazioni sociali cooperano nel vincolare ciò che viene riconosciuto.
4.4 L'occhio e la retina: dall'ottica alla fototrasduzione
La luce visibile è una piccola porzione dello spettro elettromagnetico. Le sue caratteristiche fisiche possono essere descritte, fra l'altro, attraverso distribuzioni di lunghezze d'onda e intensità. Prima di diventare esperienza visiva, la luce attraversa una sequenza di strutture ottiche. La cornea contribuisce in modo rilevante a rifrangere i raggi, ossia a cambiarne direzione; l'iride regola il diametro della pupilla, modificando la quantità di luce che entra nell'occhio; il cristallino, modificando la propria curvatura, permette l'accomodazione, fondamentale per mettere a fuoco oggetti a distanze diverse. L'immagine proiettata sulla retina è capovolta rispetto alla scena esterna, ma il sistema visivo non deve “girarla” consapevolmente: l'orientamento della percezione emerge dall'organizzazione e dalla calibrazione delle relazioni sensomotorie.
La retina è un tessuto nervoso stratificato che riveste il fondo dell'occhio. Comprende fotorecettori, interneuroni, cellule bipolari, cellule amacrine e orizzontali, cellule gangliari e cellule di sostegno. I fotorecettori sono principalmente di due classi. I coni si distribuiscono con massima densità nella regione centrale della retina, in particolare nella fovea, e partecipano alla visione dei colori e dei dettagli in condizioni di luce adeguata. I bastoncelli sono molto numerosi nelle regioni extrafoveali e risultano particolarmente importanti in condizioni di illuminazione debole. La fovea non contiene un numero significativo di bastoncelli: fissare direttamente una stella molto debole può perciò renderla meno evidente di quanto non accada guardando leggermente a lato.
La trasduzione visiva possiede una proprietà apparentemente controintuitiva: quando i fotorecettori assorbono luce, la loro membrana tende a iperpolarizzarsi rispetto allo stato al buio, con conseguente modificazione del rilascio di glutammato. Questa trasformazione dipende da una cascata biochimica attivata dai pigmenti visivi. Nei bastoncelli, per esempio, la rodopsina contribuisce a un processo che riduce la concentrazione intracellulare di un messaggero e modula canali ionici. Le cellule bipolari “ON” e “OFF” rispondono in modo diverso ai cambiamenti di segnalazione, permettendo di rappresentare incrementi e decrementi locali della luminanza.
Le cellule gangliari integrano segnali retinici e i loro assoni formano il nervo ottico. Parte delle vie si incrocia al chiasma ottico: l'informazione proveniente dalla metà destra del campo visivo viene elaborata prevalentemente nell'emisfero sinistro e viceversa. La maggior parte delle proiezioni necessarie alla visione cosciente raggiunge il nucleo genicolato laterale del talamo e poi le aree visive corticali; altre vie partecipano a orientamento, movimenti oculari, riflessi e funzioni non strettamente visive. È perciò impreciso descrivere il nervo ottico come un semplice cavo che trasferisce fotografie al cervello.
Il sistema retinico non conserva passivamente tutti i valori della luce. Molte cellule gangliari presentano campi recettivi, regioni in cui uno stimolo modifica la loro attività. Nei campi “centro-periferia”, la stimolazione di una regione centrale può produrre un effetto opposto alla stimolazione di quella circostante; questa organizzazione contribuisce a evidenziare contrasti e margini. L'operazione è utile perché differenze spaziali possono risultare più informative di una luminanza uniforme, ma crea anche condizioni in cui il contesto influenza fortemente l'apparenza di superfici identiche.
La visione ha inevitabilmente dei limiti geometrici e fisiologici. Nel punto in cui emerge il nervo ottico manca una popolazione di fotorecettori: si forma il punto cieco fisiologico. Solitamente non lo notiamo perché gli occhi forniscono informazioni sovrapposte e il sistema percettivo sfrutta il contesto per mantenere continuità. Inoltre la risoluzione dei dettagli diminuisce verso la periferia del campo visivo, benché tale periferia sia fondamentale per orientamento e rilevazione di cambiamenti. I rapidi movimenti oculari, chiamati saccadi, distribuiscono successivamente l'esame foveale su punti diversi: l'impressione di vedere ogni dettaglio della scena in un unico istante è quindi ingannevole.
Esperimento classico — Il punto cieco e le implicazioni dell'informazione mancante
Un semplice esperimento didattico può illustrare il punto cieco senza utilizzare risultati inventati: si disegnano su un foglio una croce e un punto a distanza orizzontale adeguata, si chiude un occhio e si fissa la croce con l'altro, avvicinando lentamente il foglio. A una determinata distanza il punto può scomparire momentaneamente, perché la sua immagine cade sulla regione retinica priva di fotorecettori. La distanza dipende dalle dimensioni dello stimolo e dalla geometria individuale; il risultato non è garantito in ogni tentativo. L'esercizio mostra che una parte dell'esperienza visiva continua esiste anche in assenza di un corrispondente campionamento locale dello stimolo.
Contrasto retinico, acuità e limiti della risoluzione
La nostra capacità di distinguere dettagli non dipende unicamente dal numero totale di fotorecettori. Il contrasto fra un elemento e lo sfondo, la dimensione dei campi recettivi, la diffusione ottica della luce, il grado di fissazione e la modalità con cui le informazioni vengono integrate influenzano l'esito. L'acuità visiva indica la capacità di risolvere particolari spaziali o discriminare simboli in condizioni definite; nella pratica clinica viene misurata con procedure standardizzate, mentre la psicologia sperimentale può utilizzare stimoli più controllati, come reticoli di luminanza alternata. Un risultato ottenuto con lettere a forte contrasto non descrive per intero la prestazione nella nebbia o in un ambiente con illuminazione irregolare.
La sensibilità al contrasto rappresenta la capacità di rilevare differenze di luminanza o pattern spaziali a diversi livelli di contrasto. È possibile avere un'acuità buona in una prova specifica e difficoltà nella rilevazione di segnali poco contrastati. Per comprenderlo, si immagini una figura grigia su fondo grigio leggermente diverso: entrambi possono essere abbastanza luminosi, ma i loro valori sono vicini e la separazione può risultare difficile. Alcuni test sperimentali presentano alternanze fra bande chiare e scure di ampiezza crescente; la risposta dipende dalla frequenza spaziale del pattern e dalle caratteristiche del sistema visivo.
La foveazione e i movimenti oculari completano questa descrizione. Quando leggiamo una riga, gli occhi effettuano saccadi e brevi fissazioni; durante queste ultime viene acquisita molta dell'informazione utile al riconoscimento delle parole. L'area centrale possiede una risoluzione più elevata, mentre le regioni periferiche forniscono informazioni importanti sul contesto e sulla possibile posizione della prossima fissazione. Non ne deriva che durante le saccadi il cervello “spenga” completamente l'esperienza; si osservano meccanismi complessi di stabilità visiva e di riduzione di sensibilità a particolari stimoli durante il movimento.
Vedere attraverso limiti sensoriali diversi
Le differenze individuali nella visione dei colori possono derivare da variazioni genetiche e fisiologiche dei pigmenti o da condizioni acquisite. Alcune persone distinguono con maggior difficoltà certe combinazioni cromatiche, senza per questo vedere necessariamente il mondo “in bianco e nero”. Nei prodotti digitali è quindi metodologicamente scorretto affidare a due colori simili l'unico canale per comunicare uno stato essenziale. Simboli, etichette testuali, differenze di forma e controllo del contrasto forniscono segnali ridondanti. La progettazione accessibile costituisce un'applicazione diretta della comprensione delle differenze percettive e richiede test con le persone interessate, non soltanto l'uso di una media statistica.
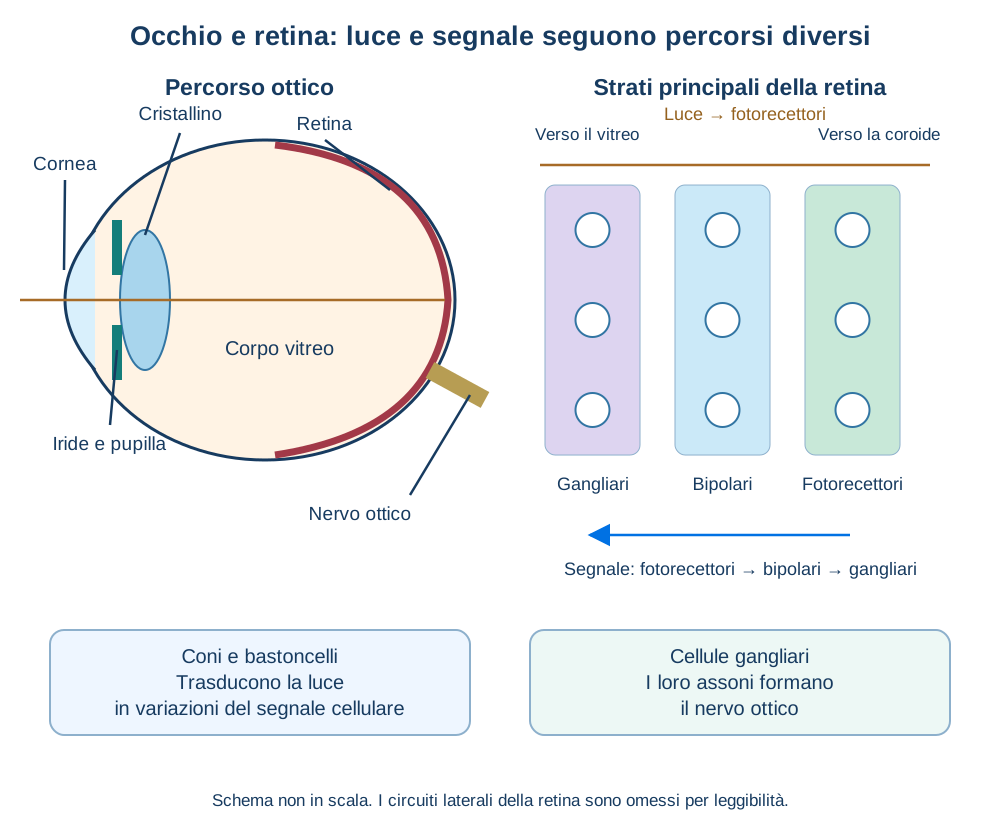
Tabella 4.3 — Principali stazioni del percorso visivo
Struttura | Funzione essenziale | Precisazione |
|---|---|---|
Cornea e cristallino | Rifrazione e messa a fuoco | Il cristallino cambia forma con l’accomodazione |
Retina | Fototrasduzione ed elaborazione locale | Coni e bastoncelli sono differenti |
Nervo ottico | Trasmissione dei segnali gangliari | Non trasporta immagini già interpretate |
Talamo visivo | Trasmissione e modulazione | Proiezioni principali verso la corteccia |
Corteccia visiva | Elaborazione e integrazione distribuita | Le vie dorsale e ventrale interagiscono |
4.5 Colore, forme e vie corticali della visione
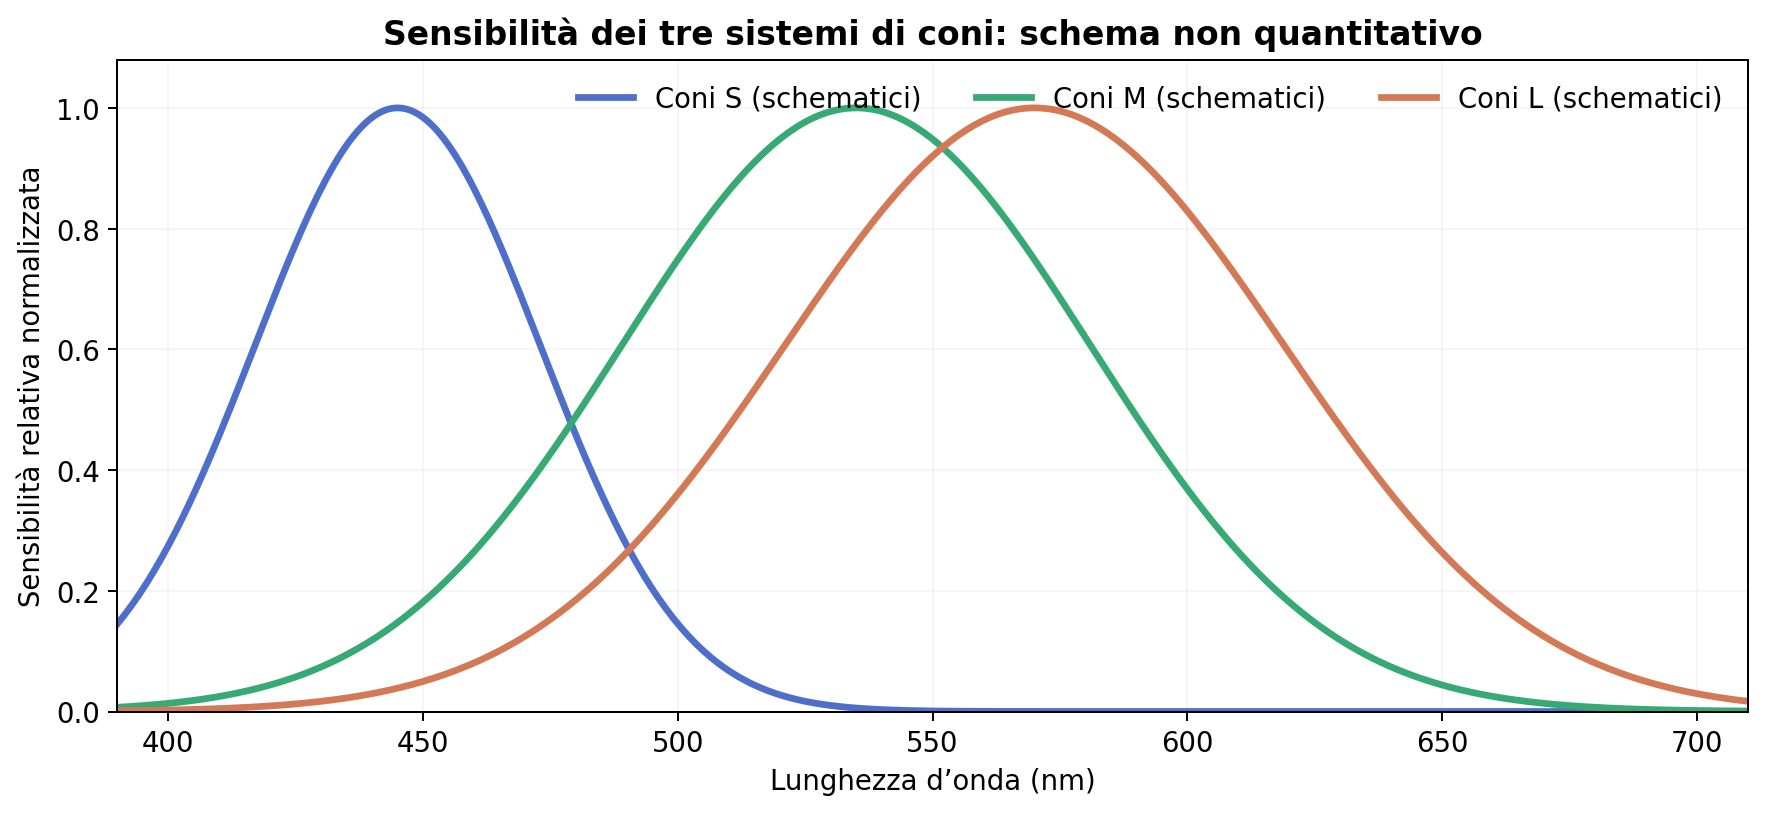
La percezione cromatica non dipende da un sensore capace di leggere direttamente ogni possibile colore. Nell'essere umano con visione tricromatica tipica, tre classi di coni possiedono sensibilità spettrali differenti e fortemente sovrapposte, tradizionalmente indicate come S, M e L in relazione alle regioni di spettro alle quali rispondono più efficacemente. Il segnale proveniente da una singola classe di coni è ambiguo: due combinazioni di intensità e lunghezza d'onda possono produrre la medesima risposta. Confrontando l'attività relativa di più classi, il sistema visivo ricava informazioni sul contenuto spettrale dello stimolo. Per questo un colore percepito non equivale a una lunghezza d'onda singola e l'illuminazione circostante conta molto.
La teoria tricromatica, associata storicamente a Thomas Young e Hermann von Helmholtz, spiega la discriminazione cromatica attraverso tre meccanismi recettoriali. La teoria dei processi opponenti, sviluppata da Ewald Hering e approfondita fisiologicamente nelle ricerche successive, considera invece circuiti che confrontano segnali lungo assi funzionali, approssimativamente rosso-verde, blu-giallo e chiaro-scuro. Le due tradizioni non sono alternative rigidamente incompatibili: analizzano livelli differenti del sistema visivo. I coni costituiscono una base di campionamento, mentre canali opponenti contribuiscono alla codifica successiva dei contrasti cromatici. Parlare genericamente di “tre colori fondamentali nell'occhio” rischia di confondere la sensibilità degli opsini con le categorie del linguaggio quotidiano.
La costanza del colore è la relativa stabilità con cui giudichiamo la proprietà cromatica delle superfici nonostante l'illuminazione cambi. Un foglio bianco può riflettere distribuzioni spettrali molto diverse sotto luce calda o fredda, eppure spesso continua ad apparire bianco. Il sistema visivo combina informazioni locali, relazioni di contrasto e indizi sull'illuminazione della scena. Questa compensazione è utile ma non infallibile: fotografie ambigue possono produrre giudizi cromatici divergenti quando osservatori diversi assumono condizioni di illuminazione differenti. Tali differenze non autorizzano a dedurre che alcune persone vedano necessariamente la realtà in modo più corretto delle altre.
Dal nervo ottico i segnali raggiungono circuiti sottocorticali e la corteccia visiva primaria, spesso indicata come V1, situata prevalentemente nel lobo occipitale. Le ricerche di David Hubel e Torsten Wiesel sui campi recettivi dei neuroni visivi mostrarono che alcune cellule corticali sono selettive per caratteristiche come l'orientamento di una linea o il movimento in una direzione. Un campo recettivo non significa che il neurone conservi una piccola immagine degli oggetti; significa che esistono condizioni stimolatorie alle quali la sua risposta cambia in modo sistematico. Le risposte dipendono inoltre da contesto, stato dell'animale, stimoli complessi e reti di connessione, non soltanto da un segmento di linea isolato.
Nella descrizione funzionale del sistema visivo si distinguono spesso una via ventrale, che collega regioni occipitali e temporali e sostiene analisi delle caratteristiche degli oggetti e il loro riconoscimento, e una via dorsale, che coinvolge regioni occipito-parietali e contribuisce all'elaborazione spaziale, al movimento e al controllo visivo dell'azione. La formula didattica “che cosa” e “dove/come” aiuta a ricordare alcune specializzazioni, ma entrambe le vie interagiscono ampiamente. Non esistono due tubi indipendenti con funzioni completamente separate. Per riconoscere e afferrare una tazza, il cervello deve integrarvi posizione, forma, significato e programmi motori.
Gli studi su persone con danni cerebrali offrono importanti verifiche della distinzione. Alcune lesioni occipito-temporali compromettono il riconoscimento di oggetti pur conservando capacità visive elementari: si parla, in certi quadri, di agnosia visiva. Altre lesioni possono interferire con la capacità di utilizzare informazioni visive per guidare movimenti accurati, anche quando la persona sa descrivere caratteristiche dell'oggetto. L'interpretazione dei casi clinici richiede però cautela, perché una lesione raramente coincide con una funzione isolata e possono intervenire strategie compensative. Le dissociazioni neuropsicologiche rafforzano l'idea di elaborazioni parzialmente differenziate, non di moduli completamente indipendenti.
La percezione delle facce costituisce un caso particolarmente studiato. Molti osservatori riconoscono rapidamente identità, direzione dello sguardo ed espressioni, e varie reti corticali mostrano selettività per immagini di volti. Si parla di prosopagnosia quando esiste una compromissione significativa del riconoscimento dei volti non spiegabile semplicemente da una generale riduzione dell'acuità visiva; il disturbo può essere acquisito o presente in forma evolutiva. Anche qui la specializzazione è relativa: il riconoscimento efficace nasce dalla cooperazione fra caratteristiche visive, memoria e contesto sociale.
Evidenza storica — Campi recettivi e generalizzabilità
Le ricerche classiche di Hubel e Wiesel utilizzarono registrazioni fisiologiche in sistemi visivi animali, presentando stimoli controllati per identificare proprietà di risposta. L'unità di osservazione era l'attività di singole cellule o piccoli gruppi di neuroni e la variabile sperimentale riguardava, fra l'altro, la posizione e l'orientamento di linee luminose. Queste indagini furono decisive per la comprensione dell'organizzazione sensoriale, ma non consentono da sole di dedurre come vengano riconosciuti oggetti reali complessi in una scena naturale. Le neuroscienze attuali integrano registrazioni, immagini cerebrali, compiti comportamentali e modelli computazionali per esaminare come i codici locali partecipino all'elaborazione distribuita.
Stimoli metamèri e il carattere relazionale del colore
Due distribuzioni di luce fisicamente differenti possono produrre risposte molto simili nelle tre classi di coni di un osservatore, risultando indistinguibili sul piano cromatico in condizioni date. Questi stimoli sono detti metameri. Il fenomeno è centrale nelle tecnologie di rappresentazione del colore: uno schermo combina luce emessa da pochi primari per generare esperienze che assomigliano a colori osservati in scene naturali molto più complesse. Non riproduce però tutte le possibili distribuzioni spettrali della luce che raggiunge l'occhio. La somiglianza dipende dall'osservatore, dall'adattamento, dal contesto e dalle condizioni di illuminazione.
L'idea chiarisce perché identificare un colore percepito con un'unica lunghezza d'onda sia eccessivamente semplicistico. Una superficie appare colorata in funzione della luce che riflette e del sistema che la osserva, non perché possieda una singola frequenza visibile inscritta nella materia. In ambito sperimentale è necessario distinguere stimoli fisicamente equivalenti rispetto a una misura, stimoli metamerici per un osservatore e stimoli che producono giudizi verbali uguali. Tali distinzioni diventano importanti nel confronto fra gruppi, dispositivi e ambienti.
Dal riconoscimento di linee alle categorie
I neuroni sensibili all'orientamento non possono, singolarmente, spiegare il riconoscimento di una bicicletta, di un volto o di una parola. Le caratteristiche locali devono essere combinate su scale spaziali e temporali differenti e poste in relazione con la memoria. Una grande parte della ricerca contemporanea esamina perciò rappresentazioni distribuite: il riconoscimento emerge dall'attività coordinata di popolazioni di cellule e può adattarsi a cambiamenti della forma, della prospettiva e dell'illuminazione. I modelli computazionali ispirati alla visione biologica permettono di formulare ipotesi su elaborazioni gerarchiche, ma il fatto che una rete artificiale classifichi immagini con successo non prova che utilizzi le stesse strategie cerebrali degli esseri umani.
Inoltre, riconoscere non significa semplicemente assegnare un'etichetta. La stessa tazza può essere rappresentata come oggetto fisico, come recipiente con una determinata funzione, come bene di proprietà personale o come elemento significativo in un ricordo. Questi livelli di rappresentazione coinvolgono processi diversi, dal controllo motorio alle associazioni semantiche. La distinzione fra vie visive non sostituisce quindi una spiegazione degli scopi del comportamento, del ruolo dell'attenzione e delle esperienze passate.
4.6 Organizzazione percettiva: dalla Gestalt al riconoscimento degli oggetti
Quando osserviamo una bicicletta, non percepiamo normalmente un inventario disordinato di segmenti metallici, dischi e macchie di colore. Vediamo un oggetto unitario. I ricercatori della tradizione della psicologia della Gestalt formularono il problema nei termini dell'organizzazione dell'esperienza: il tutto percepito possiede relazioni e regolarità che non sono descritte da una semplice somma di elementi isolati. Max Wertheimer, Wolfgang Köhler e Kurt Koffka contribuirono a sviluppare questa prospettiva, anche in critica ai tentativi di decomporre l'esperienza in sensazioni elementari scollegate.
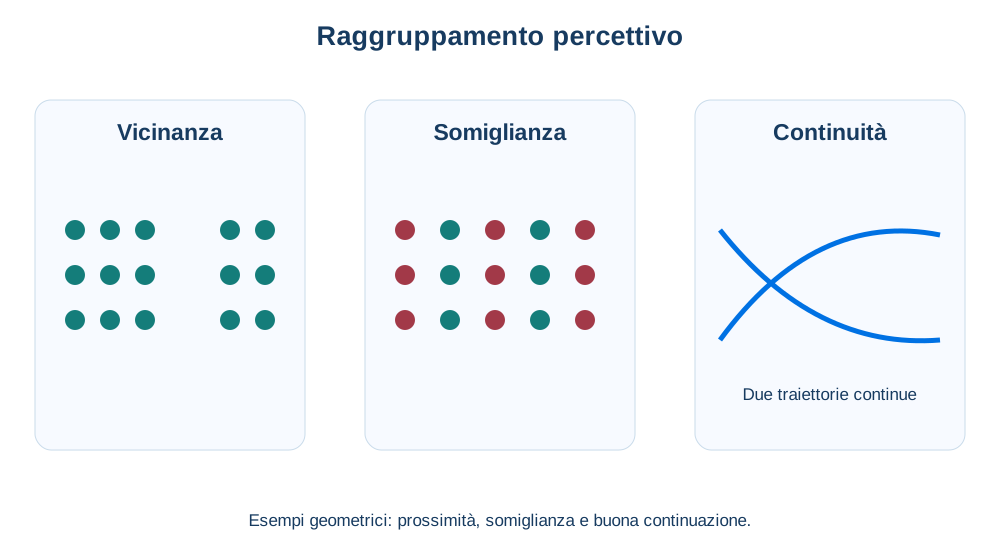
Fra i principi classici di organizzazione figurano la vicinanza, per cui elementi prossimi tendono a essere raggruppati; la somiglianza, per cui componenti simili possono essere percepite come appartenenti a uno stesso insieme; la buona continuazione, che favorisce interpretazioni con contorni continui; la chiusura, che permette di percepire forme incomplete come strutture unitarie; e il destino comune, per cui elementi che si muovono insieme vengono spesso raggruppati. Questi principi descrivono tendenze percettive, non leggi assolute indipendenti da distanza, compito, cultura e caratteristiche degli stimoli.
Un passaggio fondamentale riguarda la distinzione tra figura e sfondo. In molte scene alcune regioni vengono trattate come oggetti delimitati e altre come superficie retrostante. L'inversione di questa organizzazione è evidente nelle figure ambigue, in cui due interpretazioni differenti competono per lo stesso contorno. La difficoltà non dipende necessariamente dalla scarsa accuratezza dei recettori: nasce dalla possibilità che gli stessi dati locali siano coerenti con più descrizioni dell'insieme. Quando una persona riconosce un profilo di vaso e un'altra interpreta due facce contrapposte, la configurazione fisica può essere identica, mentre varia l'assegnazione delle regioni a figure e sfondo.
La completazione amodale si verifica quando percepiamo la continuazione di un oggetto dietro a un ostacolo, senza che la parte nascosta sia direttamente visibile. Se una persona passa dietro un palo, in condizioni ordinarie continuiamo a rappresentare un corpo unitario, non due metà che si dissolvono e ricompaiono. L'esempio rivela che la percezione include ipotesi sulla persistenza degli oggetti e sui rapporti di occlusione, spesso giustificate dall'esperienza con ambienti fisici stabili. L'organizzazione spaziale prepara così la rappresentazione di oggetti, scene e traiettorie nel tempo.
Nel riconoscimento degli oggetti intervengono anche informazioni sulla forma tridimensionale, sulla struttura delle parti e sulle categorie apprese. Una descrizione basata sulle proprietà geometriche può contribuire a riconoscere un oggetto da diversi angoli di osservazione; in altre condizioni diventano importanti l'esperienza con immagini specifiche, le caratteristiche di superficie o l'appartenenza a una categoria semantica. Modelli basati su componenti strutturali, modelli di viste apprese e reti neurali computazionali rispondono ad aspetti diversi del problema. Non esiste una singola teoria che spieghi con pari successo ogni tipo di oggetto, condizione di osservazione e livello di categorizzazione.
Un fenomeno affine è la congiunzione illusoria: in alcune condizioni di presentazione breve e attenzione limitata, caratteristiche corrette possono essere attribuite all'oggetto sbagliato, per esempio il colore di un simbolo a un altro simbolo vicino. La ricerca di Anne Treisman e colleghi ha collegato questi errori al problema dell'integrazione delle caratteristiche in rappresentazioni di oggetti. La teoria dell'integrazione delle caratteristiche attribuisce all'attenzione un ruolo centrale in varie forme di combinazione; la ricerca successiva ha però evidenziato meccanismi più articolati, influenzati dalla struttura del display e da altri processi di raggruppamento.
Un esercizio didattico utile consiste nel disegnare più file di simboli, variando sistematicamente distanza e colore, e chiedere a differenti osservatori quali elementi appartengano allo stesso gruppo. Non si tratta di una prova per stabilire una legge universale con pochi partecipanti; permette piuttosto di riconoscere che il raggruppamento dipende dalle relazioni fra elementi e che una variazione minima del contesto può cambiare la descrizione complessiva. Un vero studio richiederebbe controllo delle caratteristiche degli stimoli, criteri di risposta e una procedura replicabile.
4.7 Profondità, dimensione, movimento e illusioni visive
La retina riceve una proiezione bidimensionale, mentre il mondo in cui agiamo ha profondità. La percezione della profondità utilizza molteplici indizi, nessuno dei quali è sufficiente in ogni circostanza. Gli indizi monoculari possono essere impiegati anche con un solo occhio: la sovrapposizione di superfici suggerisce un ordine di distanza; la prospettiva lineare fa convergere nell'immagine linee parallele del mondo; la variazione della trama visibile, delle ombre e della dimensione relativa offre ulteriori elementi. Un oggetto che occlude parte di un altro è in genere interpretato come più vicino, ma l'indizio funziona soprattutto in combinazione con la struttura della scena.
La disparità binoculare deriva dalle piccole differenze tra le immagini registrate dai due occhi, separati nello spazio. I circuiti visivi possono utilizzare queste differenze per stimare relazioni di profondità, processo noto come stereopsi. Non è corretto sostenere che tutta la profondità scompaia senza visione binoculare: numerosissimi indizi monoculari restano disponibili. Il contributo della disparità cresce in particolari intervalli di distanza e in compiti che richiedono giudizi fini di posizione relativa. Persone con caratteristiche binoculari differenti possono adottare strategie percettive e motorie altrettanto efficaci in numerose attività quotidiane.
Il movimento dell'osservatore introduce ulteriori informazioni. Attraverso la parallasse di movimento, oggetti posti a distanze differenti producono cambiamenti retinici diversi quando ci spostiamo. Inoltre il flusso ottico, ossia il pattern di movimento delle immagini sulla retina durante lo spostamento, offre indicazioni sulla direzione del movimento e sul tempo di avvicinamento a superfici. Chi guida o cammina integra queste informazioni con movimenti oculari, dati vestibolari e conoscenze sull'ambiente. La percezione spaziale è dunque strettamente legata all'azione, non a una ricostruzione fotografica statica.
La costanza di grandezza consiste nella relativa stabilità delle dimensioni attribuite a un oggetto mentre la sua immagine retinica cambia con la distanza. Un amico che si allontana occupa meno spazio sulla retina, ma non viene normalmente percepito come una persona che si rimpicciolisce. Il sistema utilizza indizi prospettici e conoscenze sulle dimensioni familiari. Quando la distanza viene stimata erroneamente, anche la dimensione apparente può subire variazioni. Le illusioni di Ponzo e di Müller-Lyer vengono frequentemente impiegate per discutere tali fenomeni, ma il loro meccanismo è complesso e non si riduce con certezza a una sola regola prospettica.
Il movimento visivo può essere rilevato confrontando cambiamenti di luminanza e posizione nel tempo. Alcune aree corticali, fra cui il complesso comunemente indicato come MT/V5, contribuiscono in modo importante all'analisi di direzione e velocità. In certe condizioni compare il movimento apparente: due stimoli statici presentati in rapida successione in posizioni differenti possono essere percepiti come un oggetto che si muove. Lo studio di questo fenomeno contribuì alle ricerche della Gestalt. Un altro esempio è l'illusione della cascata: dopo aver fissato un movimento costante, una scena ferma può apparire muoversi in direzione opposta per un breve periodo, fenomeno interpretabile in relazione ad adattamenti nei circuiti sensibili al movimento.
Un problema distinto riguarda la percezione del movimento biologico. Anche quando una persona viene rappresentata da pochi punti luminosi collocati vicino alle articolazioni, gli osservatori possono riconoscere un movimento umano o animale. La capacità dipende dalla struttura dinamica del segnale e dal contesto. Non implica che esista un singolo “rilevatore dell'umano”: più processi contribuiscono a elaborare movimento, forma, familiarità e aspettative. La stessa informazione può risultare più o meno riconoscibile se i punti vengono presentati con disturbo visivo, orientamento modificato o tempi differenti.
Illusioni: errori utili per formulare ipotesi
Le illusioni sono strumenti scientifici perché permettono di isolare condizioni in cui un giudizio percettivo cambia anche quando una grandezza fisica resta uguale. Per interpretarle, occorre separare almeno tre aspetti: la misura fisica controllata, il tipo di compito affidato all'osservatore e il modello proposto per spiegare la risposta. È improprio dedurre da un'immagine sorprendente che “il cervello inganna sempre” o che “non esiste una realtà oggettiva”: l'illusione dimostra piuttosto che il sistema utilizza regolarità contestuali, solitamente utili, che possono produrre stime distorte in configurazioni particolari.
Percezione del tempo di collisione e controllo dell'azione
Un organismo che si muove deve valutare anche quanto rapidamente una superficie si stia avvicinando. Una grandezza utile è il tempo al contatto, stimabile in alcune condizioni dal rapporto fra dimensione angolare dell'oggetto e velocità con cui questa cambia. La ricerca sul cosiddetto parametro tau ha mostrato come il pattern di espansione ottica possa fornire informazioni temporali, pur senza garantire una stima esatta in ogni situazione. Il dato dipende dalla traiettoria dell'oggetto, dal moto dell'osservatore e da ipotesi sulla geometria. Si tratta dunque di un indizio importante, ma non dell'unico meccanismo con cui giudichiamo una possibile collisione.
Pensiamo a una palla che si avvicina: gli occhi e il sistema motorio devono coordinarsi prima che la palla raggiunga la mano. I cambiamenti dell'immagine e la storia dei movimenti offrono segnali che possono essere utilizzati per correggere la traiettoria. La persona non è costretta a ricostruire coscientemente la velocità in metri al secondo e risolvere un'equazione completa: l'apprendimento sensomotorio permette spesso aggiustamenti rapidi. Tuttavia competenze altamente esercitate non sono prove di un sensore infallibile; diventano vulnerabili quando il contrasto diminuisce, compaiono ostacoli o cambiano le condizioni di movimento.
Studiare le illusioni senza trarre conclusioni arbitrarie
Un esperimento su una illusione di dimensione può utilizzare più versioni di una stessa configurazione e chiedere a ciascun osservatore di regolare una linea di confronto finché appare uguale al bersaglio. Il ricercatore registra la differenza tra uguaglianza fisica e giudizio soggettivo, ripete le prove e stima una distribuzione di errori. È importante randomizzare l'ordine delle configurazioni e prevedere controbilanciamenti, perché un partecipante può ancorare la regolazione al valore iniziale. Il medesimo stimolo può inoltre essere valutato in modi differenti quando si chiede un giudizio verbale, una misura manuale o un'azione rapida.
Le illusioni vanno interpretate con un principio di economia teorica: si preferiscono spiegazioni che generano previsioni controllabili anche fuori dall'immagine originale. Proporre che un'illusione dipenda dalla profondità della scena diventa una ipotesi interessante quando si specifica come dovrebbe cambiare l'effetto modificando gli indizi di distanza. Senza previsioni differenziabili, una formula come “il cervello cerca di dare senso alla realtà” è troppo generale per costituire da sola una spiegazione scientifica.
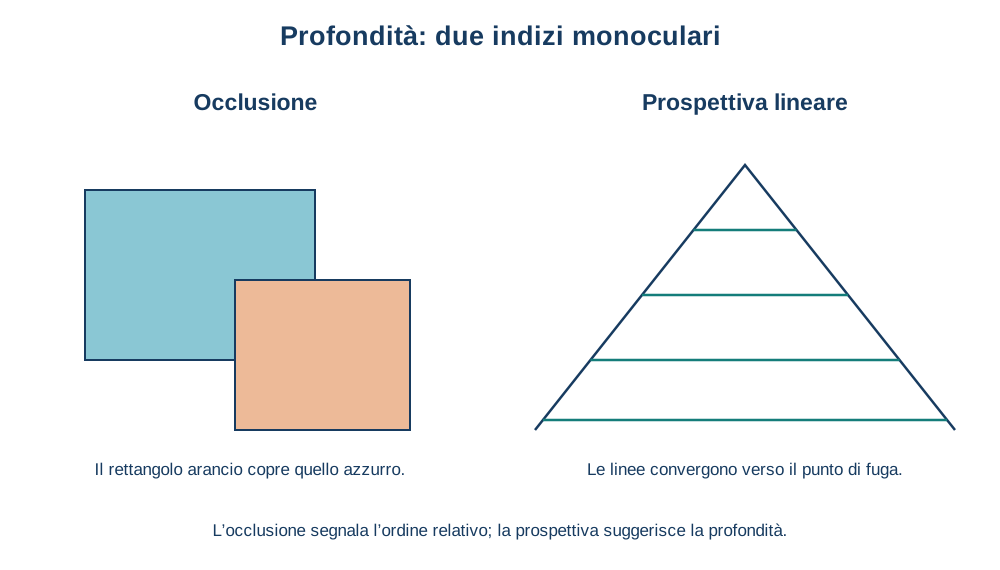
Tabella 4.4 — Profondità: indizi e interpretazioni
Indizio | Informazione disponibile | Condizione / limite |
|---|---|---|
Occlusione | Ordine relativo delle superfici | Non determina distanza assoluta |
Prospettiva lineare | Andamento proiettivo di linee e superfici | Dipende dalla geometria della scena |
Trama | Variazione spaziale della struttura visibile | Può essere alterata da materiali irregolari |
Parallasse di movimento | Relazione fra moto apparente e distanza | Dipende da movimento relativo |
Disparità binoculare | Differenza retinica fra occhi | Rilevanza varia con la distanza |
4.8 Attenzione visiva, cecità al cambiamento e limiti del multitasking
L'attenzione regola quali informazioni ricevono priorità nell'elaborazione e nell'accesso al controllo del comportamento. Non coincide con una lampada che illumina soltanto una zona del cervello: comprende diversi meccanismi di selezione, orientamento, mantenimento del compito e controllo delle interferenze. Prestare attenzione a un oggetto può facilitare l'elaborazione di alcune sue caratteristiche; ignorare stimoli irrilevanti può ridurre il carico su sistemi cognitivi che hanno capacità limitata. L'attenzione non elimina le informazioni non selezionate, e una parte di esse può comunque influenzare la prestazione.
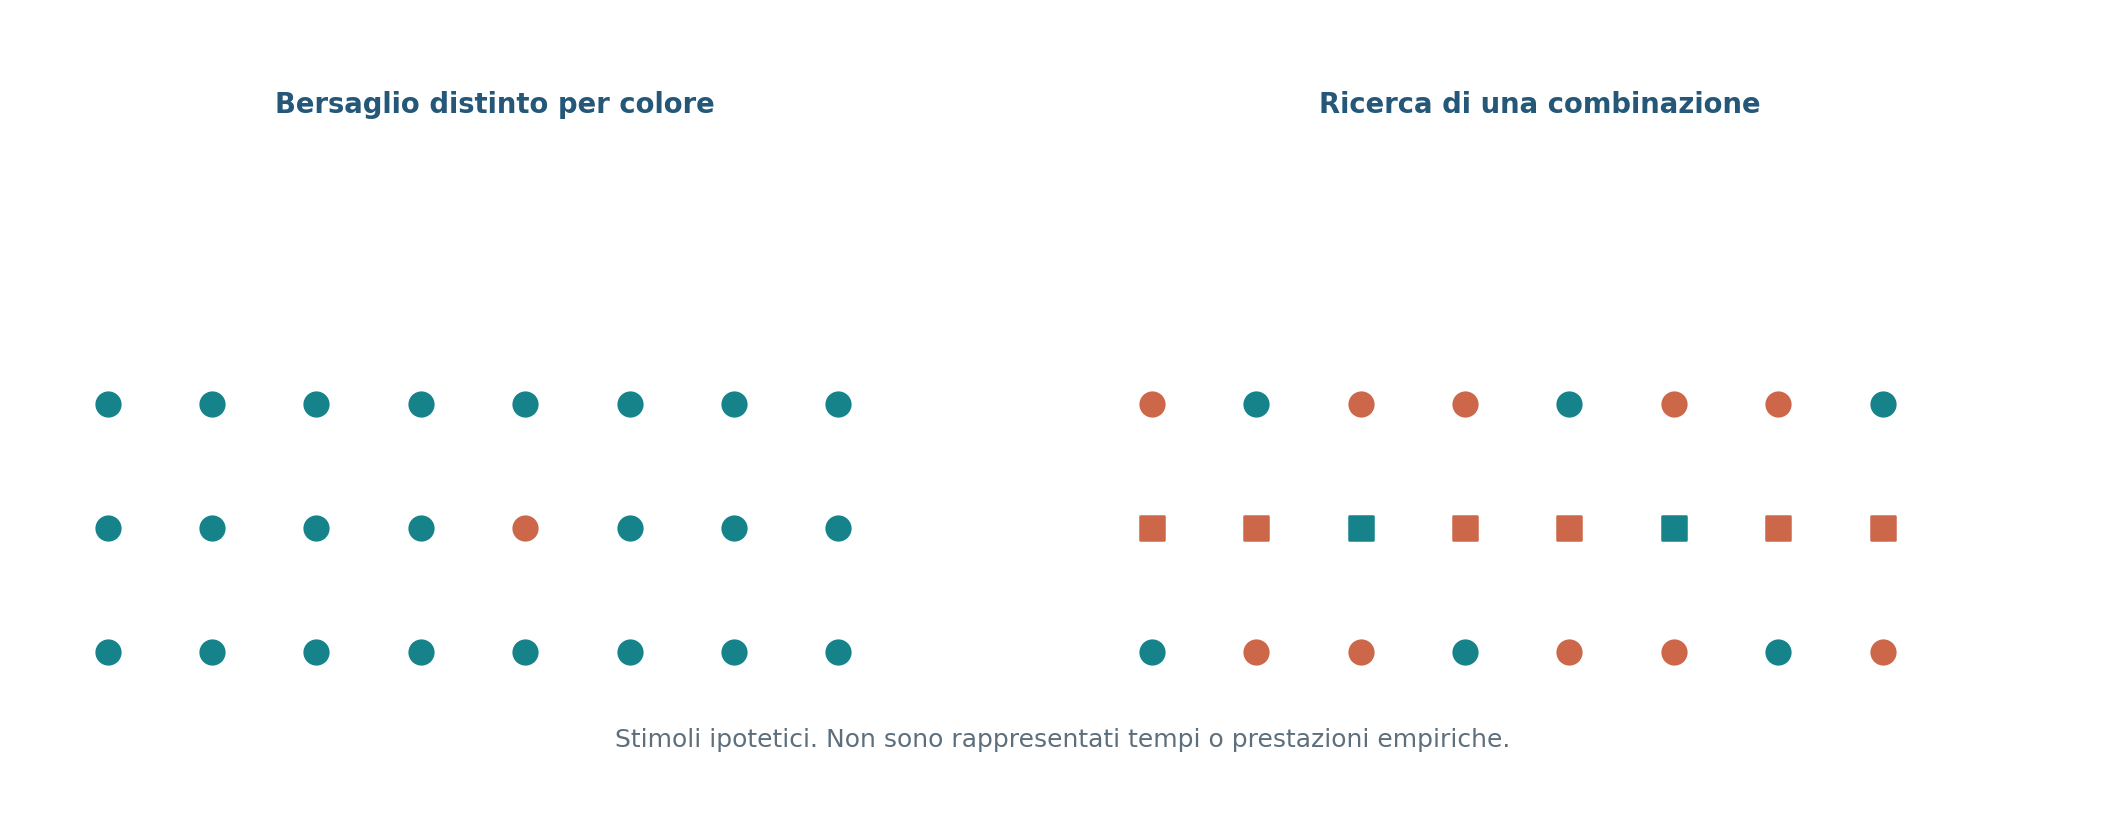
Nella ricerca visiva, un osservatore deve individuare un bersaglio tra più distrattori. Se il bersaglio si distingue nettamente per una caratteristica elementare, come un colore molto diverso, il tempo di ricerca può aumentare poco al crescere degli elementi. Se occorre trovare una combinazione particolare di proprietà, per esempio un quadrato rosso tra quadrati blu e cerchi rossi, la ricerca può richiedere una selezione più impegnativa. I modelli classici distinguono forme di elaborazione relativamente parallela da forme maggiormente selettive, ma le pendenze temporali dipendono anche da somiglianza, familiarità, raggruppamento e probabilità degli stimoli.
La cecità da inattenzione si verifica quando uno stimolo visibile e inatteso non viene rilevato perché l'attenzione è occupata altrove. In uno studio classico, Simons e Chabris chiesero ai partecipanti di contare passaggi compiuti da giocatori e inserirono nella scena un evento inatteso. Una parte degli osservatori non lo riferì: la percentuale variava con la condizione sperimentale e il tipo di evento. Il risultato non dimostra che lo stimolo non abbia prodotto alcuna risposta nei sistemi sensoriali, né che l'attenzione annulli sempre la visione consapevole. Mostra che il successo in un compito focalizzato può convivere con una mancata segnalazione di eventi sorprendenti ma non pertinenti.
La cecità al cambiamento riguarda invece la difficoltà di individuare differenze fra due scene quando la transizione è mascherata da un'interruzione, un lampo o un altro evento. Se una fotografia viene sostituita con un'altra che contiene un cambiamento rilevante, ma tra le due si inserisce una breve schermata neutra, il cambiamento può essere più difficile da notare. La continuità percepita del mondo non implica che tutti i particolari siano conservati in una rappresentazione completa e ad alta risoluzione. Per rilevare un cambiamento è spesso necessario selezionare, confrontare e mantenere sufficienti informazioni sulle regioni rilevanti.
Questi fenomeni hanno conseguenze nel mondo reale. Una persona impegnata a leggere un messaggio durante un attraversamento pedonale riduce le risorse disponibili per altri stimoli e compiti; la prestazione dipende comunque da difficoltà, esperienza e possibilità di interrompere tempestivamente l'attività. Il termine multitasking copre condizioni diverse: attività realmente parallele con bassa interferenza, alternanza rapida fra compiti e gestione di automatismi ben esercitati. Non esiste una soglia universale a partire dalla quale ogni combinazione sia impossibile; è però documentato che compiti concorrenti possono produrre costi in rapidità, errori o consapevolezza degli eventi.
In molti esperimenti sul task switching, le persone cambiano regola operativa fra prove: classificare un numero in base alla parità e poi alla grandezza, per esempio. Il cambio può introdurre un costo di commutazione, osservabile nei tempi o nell'accuratezza rispetto alle prove in cui la regola rimane stabile. Il costo dipende dalla preparazione, dall'associazione fra stimoli e risposte e dalla difficoltà delle regole. Nelle applicazioni educative o lavorative, questa letteratura suggerisce prudenza nell'interrompere continuamente attività complesse, senza giustificare slogan estremi come “il cervello può fare una sola cosa alla volta”.
La selettività dell'attenzione deve essere letta anche in chiave sociale ed etica. Le persone non si distraggono tutte nelle stesse situazioni; rumore, fatica, differenze percettive, accessibilità dell'ambiente e competenza nel compito modificano il rendimento. Un progetto ergonomico corretto non attribuisce automaticamente un incidente alla disattenzione del singolo, ma valuta anche carichi informativi, segnaletica, organizzazione degli strumenti e prevedibilità delle richieste. La ricerca sulla percezione contribuisce così alla progettazione di ambienti più sicuri e comunicazioni più comprensibili.
4.9 L'udito: trasduzione, caratteristiche del suono e localizzazione
Il suono consiste in variazioni di pressione che si propagano in un mezzo materiale. Il numero di oscillazioni al secondo, misurato in hertz (Hz), costituisce la frequenza fisica, correlata in condizioni ordinarie all'altezza percepita o tono; la distribuzione delle componenti spettrali e la loro evoluzione temporale contribuiscono al timbro, la qualità che permette di distinguere, per esempio, un pianoforte da un violino che eseguono la stessa nota. L'ampiezza del segnale è collegata all'intensità sonora, ma il volume percepito dipende anche da frequenza, durata, contesto e sensibilità individuale. Non esiste una conversione sempre lineare fra decibel e sensazione soggettiva di volume.
Il percorso dell'informazione uditiva comincia nel padiglione auricolare, che contribuisce a filtrare i suoni secondo la loro direzione, e nel condotto uditivo esterno. Le oscillazioni fanno vibrare la membrana timpanica e vengono trasmesse attraverso gli ossicini dell'orecchio medio — martello, incudine e staffa — fino alla finestra ovale dell'orecchio interno. Il sistema degli ossicini contribuisce ad adattare la trasmissione delle vibrazioni tra l'aria e i liquidi cocleari; non va descritto semplicemente come un amplificatore senza costi o limiti. La coclea contiene compartimenti fluidi e strutture meccaniche che convertono oscillazioni in movimenti differenziati lungo la membrana basilare.
Sulla membrana basilare si trova l'organo del Corti, che comprende cellule ciliate sensoriali. Le deflessioni dei loro fasci di stereociglia regolano canali meccanosensibili, causando cambiamenti del potenziale di membrana e della liberazione di trasmettitore verso fibre del nervo uditivo. La funzione delle cellule ciliate interne è particolarmente legata alla trasmissione delle informazioni sensoriali, mentre quelle esterne partecipano a meccanismi attivi di amplificazione e selettività meccanica della coclea. Questi processi sono sensibili a danni da esposizione sonora intensa, farmaci ototossici e altri fattori, con conseguenze che variano secondo la sede e la gravità dell'alterazione.
La coclea realizza una forma di analisi delle frequenze: regioni diverse della membrana basilare rispondono maggiormente a frequenze differenti. Si parla di organizzazione tonotopica, presente anche in diverse stazioni delle vie uditive centrali. Le regioni vicine alla base della coclea sono maggiormente sensibili a frequenze più alte, mentre zone più apicali rispondono preferenzialmente a frequenze inferiori. Il sistema uditivo utilizza inoltre informazioni temporali provenienti dalla sincronizzazione della scarica neurale, entro determinati intervalli di frequenza, per rappresentare caratteristiche periodiche del suono. Perciò i modelli basati sul luogo di massima risposta e quelli basati sulla temporizzazione descrivono aspetti complementari.
Per localizzare un suono, il cervello sfrutta differenze fra i due orecchi nel tempo di arrivo e nell'intensità del segnale, oltre a modificazioni spettrali determinate dalla forma del padiglione auricolare e dalle caratteristiche del capo. Le differenze temporali interaurali sono particolarmente informative per alcuni intervalli di frequenza; le differenze di intensità diventano importanti in altri. La localizzazione non è perfetta e può essere distorta da riflessioni sulle pareti e sorgenti multiple. La percezione della distanza sonora è ancora più complessa, poiché dipende anche da intensità attesa, riverberazione e caratteristiche note della sorgente.
Nella vita quotidiana ascoltiamo frequentemente più eventi acustici simultanei. La separazione delle sorgenti sonore richiede di raggruppare componenti che presumibilmente provengono dallo stesso evento: armoniche correlate, inizio e fine simultanei, continuità di un andamento melodico e posizione spaziale coerente possono favorire l'organizzazione del flusso uditivo. È il principio dell'analisi della scena uditiva, con cui una sequenza di suoni può essere percepita come una voce, un motore, una sirena o uno strumento musicale. L'attenzione aiuta a seguire una sorgente fra molte, ma il fenomeno del cocktail party non significa che possiamo ascoltare contemporaneamente ogni conversazione con la stessa accuratezza.
Le perdite uditive possono derivare, in termini generali, da difficoltà nella conduzione meccanica del suono o da alterazioni delle strutture sensoriali e neurali, talora con componenti miste. La distinzione fra ipoacusia trasmissiva e neurosensoriale orienta i possibili interventi, ma non descrive da sola l'esperienza individuale. Gli impianti cocleari, per esempio, possono trasformare il suono in pattern di stimolazione elettrica del nervo uditivo e favorire l'accesso a determinate informazioni acustiche in persone selezionate; non ricreano semplicemente un udito biologico identico a quello precedente. Le scelte comunicative, culturali e riabilitative delle persone sorde o ipoacusiche richiedono attenzione alle loro preferenze e condizioni.
Applicazione — La voce in una stanza rumorosa
In una mensa affollata, il successo nell'intendere una frase dipende da rapporto segnale-rumore, caratteristiche della stanza, distanza, direzione dei suoni, conoscenza del linguaggio e possibilità di osservare il volto dell'interlocutore. Una strategia utile può essere spostarsi in un'area meno rumorosa o disporsi in modo da ridurre la competizione acustica. È un esempio di interazione fra processo sensoriale ed organizzazione dell'ambiente, più informativo del generico consiglio di “concentrarsi di più”. Per una ricerca sperimentale si potrebbero confrontare accuratezza e tempi di risposta a livelli di rumore controllati, specificando la popolazione e i criteri di misura.
Misurare il suono: frequenza, intensità e mascheramento
La frequenza è una proprietà periodica dello stimolo, mentre il tono percepito è una qualità psicologica che ne dipende senza coincidervi perfettamente. Analogamente, i decibel esprimono livelli acustici su una scala logaritmica rispetto a un riferimento definito. Due sorgenti con lo stesso livello in decibel possono risultare percepite con volume differente se hanno spettri o durate diverse. Nei contesti di ricerca e prevenzione occorre distinguere il livello di pressione sonora, la ponderazione eventualmente adottata e la durata dell'esposizione, perché non esiste un solo numero capace di descrivere tutti gli aspetti del rischio e dell'esperienza.
Il mascheramento uditivo si verifica quando la presenza di un suono rende più difficile rilevarne un altro. Ciò può avvenire, per esempio, quando componenti del rumore occupano regioni frequenziali vicine a quelle del bersaglio. Il mascheramento può essere simultaneo oppure riguardare intervalli temporali contigui, grazie a processi di persistenza e adattamento. In laboratorio si misura quanto il livello soglia di un segnale cambia in presenza del mascheratore; questa differenza è più informativa che chiedere soltanto se “il rumore distrae”. L'effetto dipende da composizione spettrale, durata, intervallo temporale e ascoltatore.
Comprendere il parlato in condizioni difficili
L'intelligibilità del linguaggio dipende da informazioni acustiche distribuite nel tempo: consonanti e vocali differiscono per proprietà spettrali e temporali, e il contesto lessicale può aiutare a interpretare parti degradate. Non significa che il linguaggio venga ricostruito sempre correttamente; aspettative forti possono anche produrre fraintendimenti. Una situazione con più interlocutori aggiunge competizione fra sorgenti, per cui la separazione della voce richiede una combinazione di localizzazione, raggruppamento temporale e attenzione.
Nella progettazione di aule e ambienti di lavoro risultano importanti riverberazione e rumore di fondo, soprattutto quando gli ascoltatori non condividono la stessa competenza linguistica o le stesse condizioni uditive. L'effetto della riverberazione non può essere descritto semplicemente come “più volume”: segnali riflessi possono sovrapporsi nel tempo e degradare transizioni cruciali per il riconoscimento delle parole. Ridurre le fonti di rumore e garantire una comunicazione visiva accessibile può migliorare la prestazione senza pretendere dall'individuo uno sforzo attentivo indefinito.
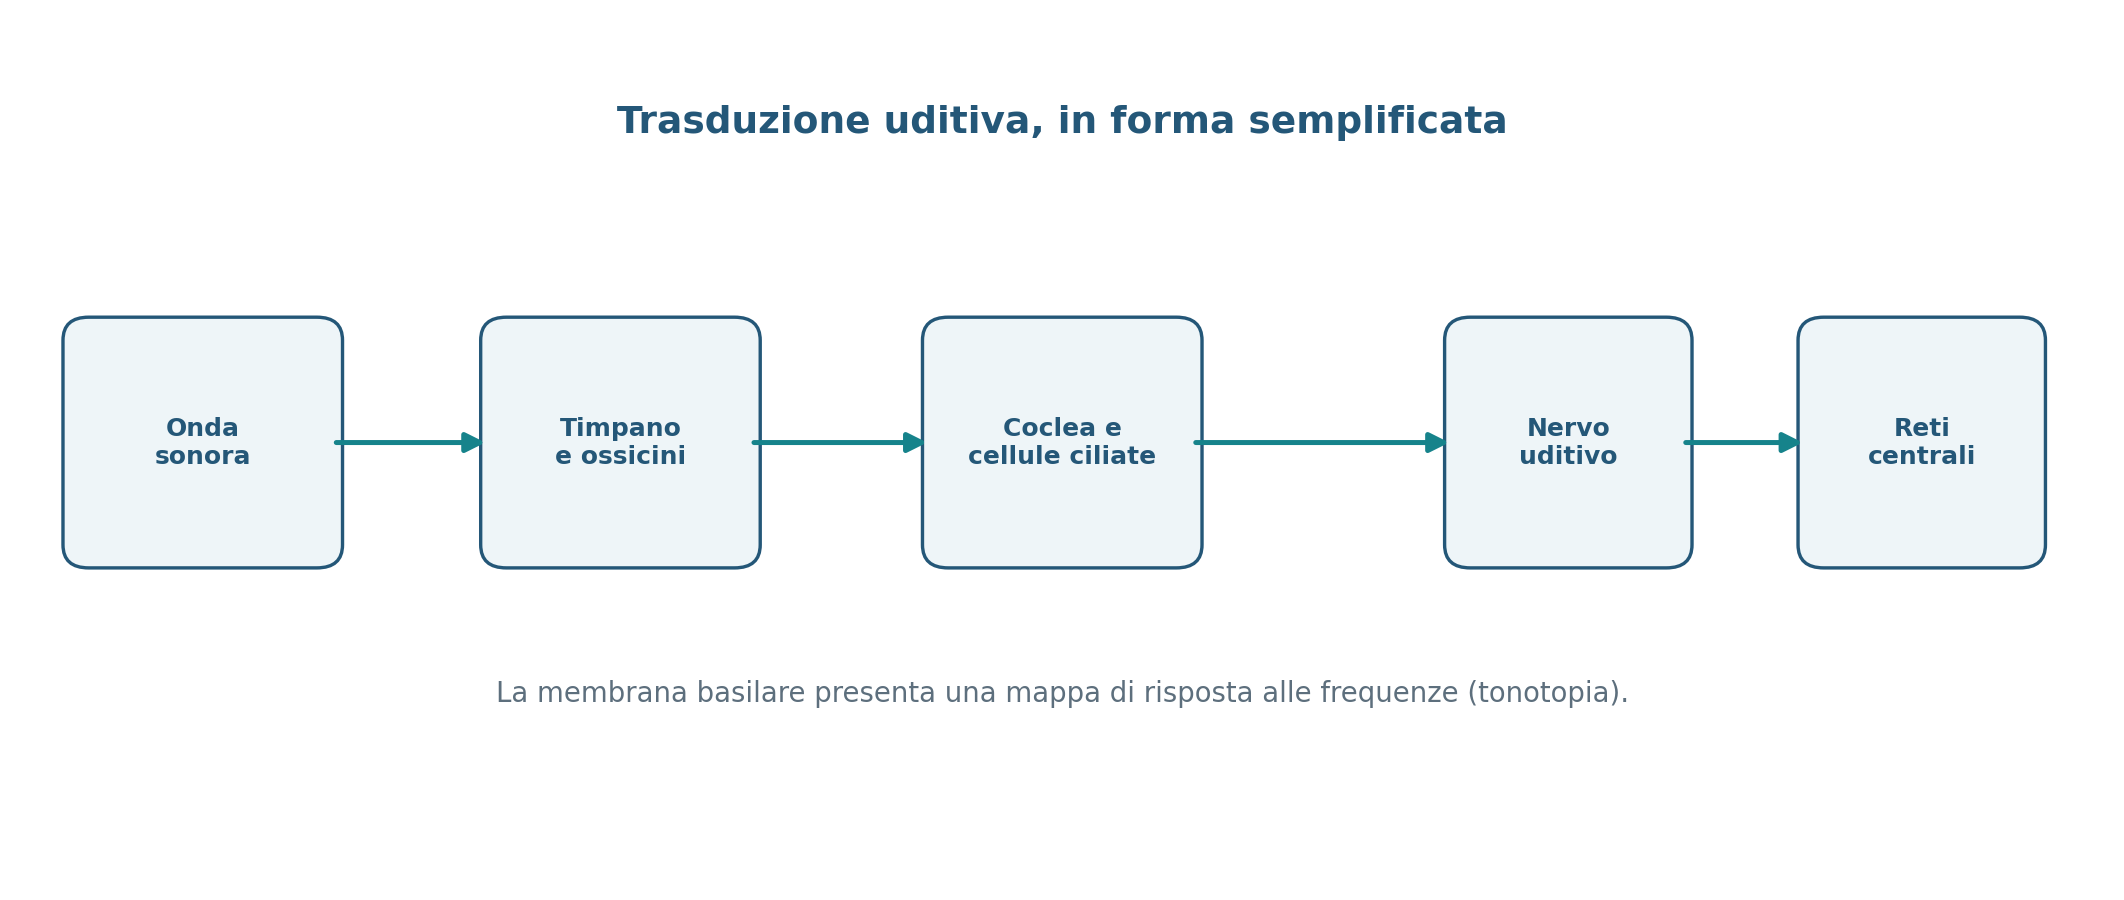
Tabella 4.5 — Il sistema uditivo, dal suono al riconoscimento
Sede | Processo prevalente | Possibile limite |
|---|---|---|
Orecchio esterno | Raccolta e filtraggio spaziale | Ostruzioni e rumore |
Orecchio medio | Trasferimento meccanico delle vibrazioni | Danni alla catena ossiculare |
Coclea | Tonotopia e trasduzione meccanica | Danno delle cellule ciliate |
Nervo uditivo | Trasmissione di segnali codificati | Alterazioni neurali |
Vie centrali | Localizzazione, separazione e riconoscimento | Interferenza attentiva e rumore |
4.10 Tatto, temperatura, dolore e interocezione
Il sistema somatosensoriale comprende diverse modalità che permettono di elaborare contatto, pressione, vibrazione, temperatura, posizione del corpo e segnali associati a possibili danni ai tessuti. È sbagliato immaginarlo come un unico “senso della pelle”. Nella cute esistono popolazioni differenti di terminazioni nervose, ciascuna con proprietà di risposta particolari. I recettori spesso chiamati meccanocettori rispondono a deformazioni meccaniche; alcune terminazioni sono sensibili a modificazioni termiche; altre partecipano alla nocicezione, cioè alla rilevazione neurale di condizioni potenzialmente dannose. Anche articolazioni, muscoli e organi interni forniscono informazioni somatiche.
Nella pelle glabra, come il palmo della mano, si possono distinguere recettori a rapido e lento adattamento, differenti per dimensione del campo recettivo e risposta a vibrazioni o pressioni. Questa organizzazione contribuisce alla capacità di riconoscere trame, distinguere due punti vicini e regolare la forza con cui tratteniamo un oggetto. La sensibilità tattile varia notevolmente fra regioni del corpo: la densità e l'organizzazione dei recettori sono particolarmente adatte a compiti fini in dita e labbra, mentre altre zone sono ottimizzate per rilevare contatti più grossolani. La mappa corticale somatosensoriale non rappresenta le parti del corpo in proporzione alle loro dimensioni anatomiche.
Gli impulsi somatici percorrono vie differenti secondo la modalità. Le informazioni tattili fini e propriocettive risalgono in gran parte attraverso il sistema delle colonne dorsali-lemnisco mediale, mentre molte componenti legate a temperatura e nocicezione utilizzano anche vie anterolaterali. Queste sono descrizioni semplificate: esistono circuiti paralleli, convergenze e modulazioni discendenti. Nella corteccia somatosensoriale primaria del lobo parietale compaiono rappresentazioni topografiche del corpo. Il termine omuncolo sensoriale indica una raffigurazione schematica dell'importanza relativa delle regioni corporee, non la presenza letterale di un minuscolo corpo nel cervello.
Il dolore richiede una distinzione particolarmente rigorosa. La nocicezione è un processo di rilevazione e trasmissione di segnali legati a condizioni potenzialmente lesive; il dolore è un'esperienza sensoriale ed emotiva che può essere associata a danno reale o potenziale, oppure somigliarvi. Non esiste una corrispondenza perfetta fra intensità della nocicezione e intensità del dolore riferito: aspettative, stato emotivo, infiammazione, apprendimento, attenzione e meccanismi di modulazione discendente possono contribuire alla variabilità. Questo non significa che il dolore sia “immaginario” quando non si identifica un danno proporzionale: l'esperienza deve essere presa sul serio e valutata clinicamente con attenzione.
La ricerca sul controllo del dolore ha identificato meccanismi per cui l'attività di vie spinali e cerebrali può aumentare o diminuire la trasmissione nocicettiva. Il modello classico del controllo a cancello, proposto da Ronald Melzack e Patrick Wall, contribuì storicamente a superare una visione troppo lineare della trasmissione del dolore. Le formulazioni moderne considerano un insieme molto più complesso di processi periferici e centrali, inclusi sistemi oppioidi endogeni, modulazione delle aspettative e plasticità. Un massaggio lieve vicino a un'area urtata può modificare transitoriamente l'esperienza, ma non rappresenta una terapia universale di qualunque forma di dolore.
Il dolore cronico non è semplicemente un dolore acuto che dura più a lungo: possono intervenire trasformazioni nei circuiti nervosi, nello stato infiammatorio, nell'attività quotidiana e nella relazione fra sintomi e comportamento. Descrivere fattori psicologici e sociali non significa attribuire colpa a chi soffre o negare componenti biologiche. Il modello biopsicosociale invita a valutare livelli differenti, ma non sostituisce indagini e trattamenti clinici basati sulla condizione specifica. In un manuale di psicologia generale è sufficiente comprendere perché l'esperienza soggettiva non si deduca meccanicamente da una misura isolata dello stimolo.
La temperatura è elaborata da popolazioni recettoriali con sensibilità differenti al caldo e al freddo e da vie nervose che rispondono anche al contesto. Si verificano fenomeni di adattamento: immergere una mano in acqua tiepida dopo una condizione fredda può produrre una sensazione diversa rispetto alla stessa acqua dopo un contatto con acqua calda. Il giudizio dipende dalla storia immediata della stimolazione, non soltanto dalla temperatura misurata del recipiente. Dimostrazioni di questo tipo richiedono prudenza per evitare esposizioni termiche potenzialmente dannose.
Con interocezione si indica una famiglia di processi attraverso cui il sistema nervoso rappresenta e regola lo stato interno del corpo: segnali viscerali, respiratori, cardiovascolari, gastrointestinali e metabolici possono contribuire all'esperienza di fame, sazietà, battito cardiaco e altri stati corporei. Non tutte queste informazioni raggiungono la coscienza. La capacità di riferire un segnale interno varia a seconda del compito e non corrisponde a una singola abilità semplice. L'interocezione può dialogare con emozioni, attenzione e aspettative, tema che verrà ulteriormente ripreso nello studio della motivazione e dello stress.
Distinguere intensità, spiacevolezza e impatto funzionale del dolore
Nella ricerca e nella pratica clinica il dolore non è sempre descrivibile con una misura singola. Una persona può riferire una sensazione intensa ma di breve durata; un'altra può riportare un livello moderato, continuo, con effetti rilevanti sul sonno o sulle attività. È utile distinguere intensità, spiacevolezza emotiva e interferenza funzionale, senza presumere che siano totalmente indipendenti. Le scale numeriche di autovalutazione costituiscono strumenti pratici, ma la loro interpretazione dipende dalle istruzioni e non consente il confronto automatico fra tutte le persone e i contesti.
Un altro fenomeno è il dolore riferito, in cui la sede dell'esperienza non coincide necessariamente con il tessuto da cui parte una componente dei segnali nocicettivi. Questa osservazione mostra che il sistema nervoso non dispone di una mappa perfettamente trasparente delle cause periferiche. Nel dolore dell'arto fantasma, alcune persone con amputazione riportano sensazioni riferite all'arto non più presente. Le spiegazioni comprendono plasticità, rappresentazioni corporee e processi periferici, con ampia variabilità individuale. L'esistenza di tale esperienza non la rende meno reale: testimonia il fatto che il dolore emerge da meccanismi distribuiti che rappresentano il corpo.
Tatto discriminativo e interazione con il movimento
Il controllo della presa offre un esempio di cooperazione fra tatto e motricità. Quando un oggetto inizia a scivolare, segnali cutanei contribuiscono a modificare rapidamente la forza esercitata dalle dita. Un oggetto liscio, pesante o fragile richiede regolazioni differenti; il sistema combina esperienze precedenti e feedback attuale. L'allenamento può migliorare la precisione di alcune abilità tattili, ma non significa che qualunque esercizio aumenti indefinitamente la sensibilità recettoriale. Le variazioni di strategia, attenzione e competenza nel compito devono essere distinte dalle modificazioni periferiche.
La discriminazione di due punti è un test classico usato per studiare sensibilità spaziale, ma non costituisce una lettura diretta della densità recettoriale. Prestazione e soglia dipendono da modalità di stimolazione, decisione dell'osservatore, localizzazione corporea e metodo di analisi. Una ricerca ben progettata distingue almeno la rilevazione del semplice contatto dalla discriminazione delle sedi, controlla la forza e la durata della stimolazione e usa più prove per ridurre il peso delle risposte casuali.
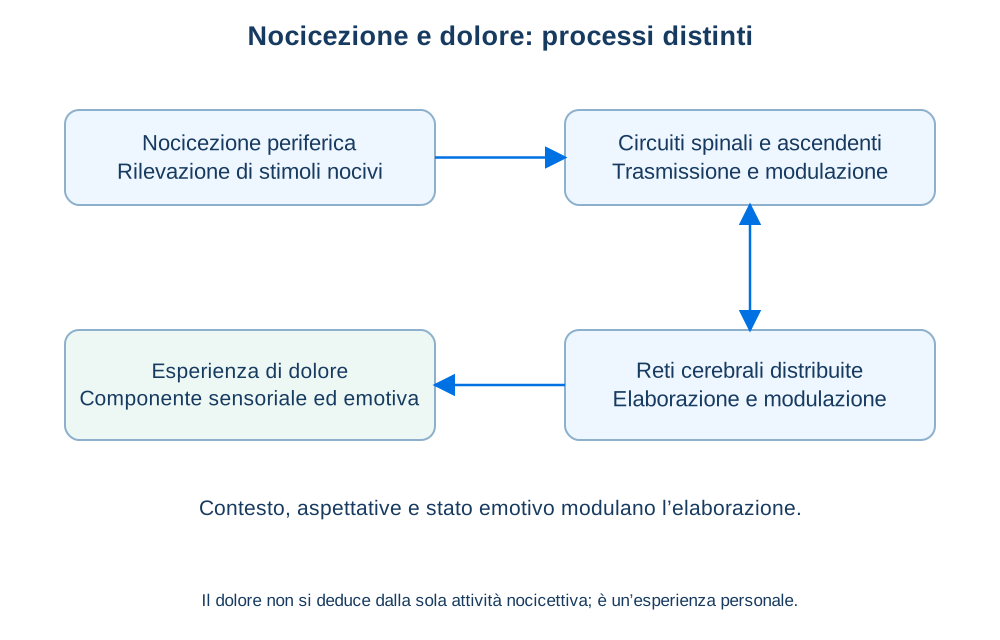
Tabella 4.6 — Sistemi somatosensoriali e relazioni col corpo
Sistema | Qualità o funzione | Nota |
|---|---|---|
Tatto | Contatto e trame | Recettori con campi e adattamenti diversi |
Temperatura | Variazioni caldo/freddo | Contesto e adattamento |
Nocicezione | Rilevazione di condizioni lesive | Non coincide con esperienza dolorosa |
Propriocezione | Posizione e movimento corporeo | Interagisce con vista e sistema vestibolare |
Interocezione | Segnali dello stato interno | Molti processi sono non coscienti |
4.11 Olfatto e gusto: la percezione chimica
I sensi chimici elaborano informazioni relative a molecole presenti nell'aria, negli alimenti o in altre sostanze a contatto con l'organismo. Nell'olfatto, molecole odorose raggiungono un epitelio specializzato nella cavità nasale e interagiscono con recettori espressi da neuroni olfattivi. Una stessa molecola può attivare più classi recettoriali con intensità differenti e una stessa classe recettoriale può rispondere a più sostanze. La qualità dell'odore dipende quindi da una rappresentazione combinatoria, non da un singolo recettore esclusivo per “rosa”, “limone” o “fumo”. Inoltre concentrazione e miscele modificano la configurazione delle risposte.
Gli assoni dei neuroni olfattivi convergono in strutture chiamate glomeruli nel bulbo olfattivo, dove si realizzano elaborazioni locali. Le proiezioni centrali raggiungono regioni corticali e strutture connesse a memoria ed emozioni. Per questo un odore può evocare ricordi autobiografici vividi, ma non ne segue che i ricordi olfattivi siano sempre più fedeli o immuni da ricostruzioni. Le associazioni emotive dipendono da esperienza, contesto e storia individuale; anche gli apprendimenti culturali influenzano quali odori vengono giudicati familiari, gradevoli o sgradevoli.
Il gusto dipende dall'attività di cellule sensoriali raggruppate in gemme gustative, localizzate prevalentemente in diverse papille della lingua ma presenti anche in altre regioni dell'area orofaringea. Le qualità gustative comunemente distinte comprendono dolce, salato, acido, amaro e umami, termine usato per il sapore associato, fra l'altro, a componenti come il glutammato. L'idea che differenti regioni della lingua rilevino esclusivamente un solo gusto è un mito diffuso. Possono esistere differenze di sensibilità fra sedi e persone, ma le principali qualità gustative sono rilevabili attraverso regioni multiple in cui siano presenti cellule adeguate.
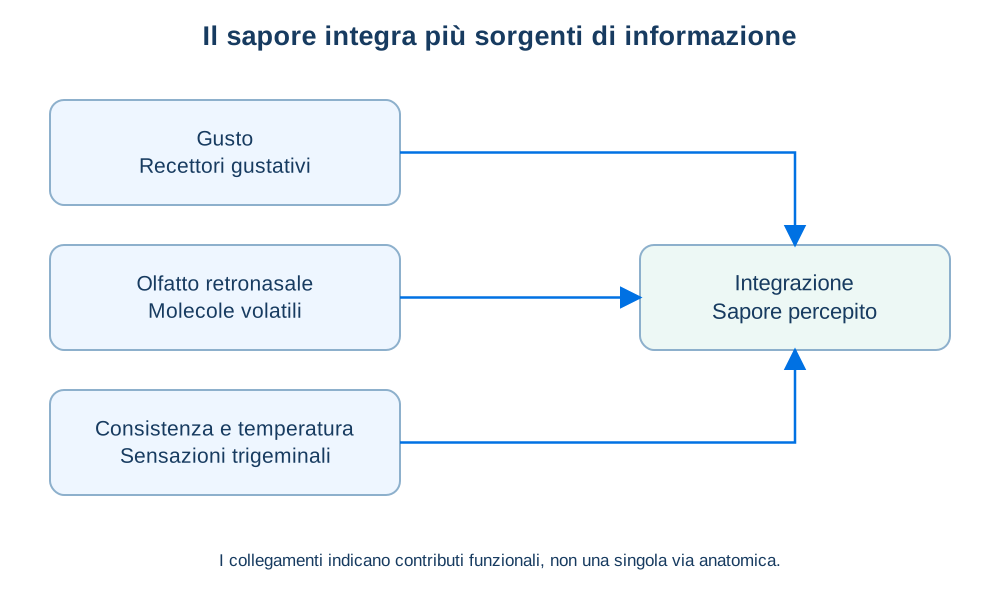
La percezione del sapore complessivo degli alimenti, spesso indicata con il termine inglese flavour, deriva dall'integrazione di gusto, olfatto retronasale, tatto orale, temperatura e altre informazioni. Durante la masticazione, molecole volatili possono risalire verso la cavità nasale; se il naso è congestionato, alcune caratteristiche degli alimenti possono risultare meno riconoscibili, mentre le qualità gustative di base possono restare in parte distinguibili. Questo fenomeno chiarisce perché gusto e sapore non siano sinonimi. Anche colori, etichette, presentazione del piatto e aspettative influenzano l'identificazione e la piacevolezza, senza modificare necessariamente tutte le proprietà chimiche del cibo.
L'olfatto mostra forme importanti di adattamento e abituazione. Se restiamo a lungo in un ambiente con un odore persistente, la sua salienza può diminuire, ma un cambiamento della miscela o un nuovo segnale può riemergere. È utile separare una riduzione dovuta alla risposta sensoriale periferica da modifiche di attenzione e apprendimento. Analogamente, preferenze gustative e reazioni di avversione possono trasformarsi in seguito a esperienze alimentari, stati fisiologici e contesto sociale. Non ogni avversione a un cibo implica un problema clinico; quando interferisce seriamente con nutrizione e benessere richiede tuttavia una valutazione appropriata.
La riduzione dell'olfatto è chiamata iposmia, mentre l'assenza della capacità di percepire odori viene indicata come anosmia, con variazioni secondo la causa e il quadro clinico. La riduzione dell'olfatto può derivare da infiammazioni, alterazioni nasali, eventi neurologici e altre condizioni. Le conseguenze non riguardano soltanto il piacere del cibo: possono influenzare la rilevazione di pericoli ambientali, le abitudini e il benessere. Le alterazioni dell'olfatto e del gusto non devono essere diagnosticate sulla base di esperimenti casalinghi poco controllati; la valutazione professionale può distinguere problemi sensoriali, farmaci, condizioni mediche e aspetti contestuali.
Approfondimento — Perché il “dolce” non corrisponde alla quantità di zucchero
La dolcezza percepita dipende dall'attivazione di recettori e dall'integrazione centrale, non soltanto dalla presenza di glucosio. Molecole chimicamente differenti possono suscitare sensazioni dolci, con intensità e profili temporali diversi. Allo stesso modo, aggiungere sale o modificare la temperatura può trasformare il sapore globale di un alimento senza cambiare in modo proporzionale la quantità di zucchero. In uno studio sperimentale occorrerebbe confrontare concentrazioni, composizioni e giudizi soggettivi, con controlli sull'ordine delle prove e sulla conoscenza degli ingredienti.
4.12 Sistema vestibolare, propriocezione, integrazione multisensoriale e sinestesia
Per muoverci nello spazio dobbiamo stimare non soltanto ciò che vediamo o udiamo, ma anche la posizione del corpo, il suo movimento e l'orientamento rispetto alla gravità. Il sistema vestibolare, contenuto nell'orecchio interno, contribuisce a queste funzioni. Nei canali semicircolari, le deformazioni di strutture sensoriali associate al movimento dei liquidi permettono di rilevare accelerazioni angolari della testa. Negli organi otolitici, utricolo e sacculo, cellule ciliate rispondono alla forza esercitata su una membrana contenente particelle minerali, contribuendo alla rappresentazione di accelerazioni lineari e orientamento rispetto alla gravità. I segnali vestibolari sono integrati continuamente con vista, propriocezione e controlli motori.
La propriocezione è la capacità di rappresentare postura e movimento delle parti del corpo attraverso segnali provenienti, fra l'altro, da muscoli e tendini. I fusi neuromuscolari informano su caratteristiche dell'allungamento muscolare; gli organi tendinei del Golgi partecipano alla rilevazione delle tensioni. Le informazioni sono impiegate in circuiti spinali e centrali per coordinare movimenti, stabilizzare articolazioni e aggiornare la rappresentazione corporea. Chiudere gli occhi e toccarsi il naso con un dito, quando possibile, illustra che la posizione delle parti del corpo non dipende esclusivamente dalla vista, anche se la precisione può variare.
Il riflesso vestibolo-oculare contribuisce a mantenere stabile l'immagine sulla retina mentre la testa ruota, generando movimenti oculari compensatori. Questa funzione permette, per esempio, di leggere un cartello mentre si compiono piccoli movimenti del capo. Quando i segnali vestibolari, visivi e somatici non concordano, possono emergere sensazioni di instabilità o malessere. La cinetosi, associata in alcune condizioni al movimento su veicoli, è un esempio di problema studiato attraverso le discrepanze fra segnali sensoriali e previsioni dell'organismo. Le manifestazioni sono individualmente variabili e non implicano automaticamente un danno dell'orecchio interno.
L'integrazione multisensoriale consente di combinare informazioni provenienti da modalità differenti in una rappresentazione coerente. Un esempio quotidiano è il riconoscimento della parola pronunciata da una persona: vista e udito possono cooperare per stabilire quali suoni siano stati prodotti. Nell'effetto McGurk, descrizioni e stimoli sperimentali mostrano che un'immagine delle labbra incompatibile con il suono ascoltato può modificare ciò che una persona riferisce di udire. L'effetto non si presenta allo stesso modo in ogni osservatore o situazione, ma illustra che la percezione del parlato non è sempre un'analisi esclusivamente uditiva seguita da una semplice interpretazione visiva.
Il sistema può anche attribuire una sensazione a una posizione suggerita da un'altra modalità. Nell'effetto ventriloquo, un suono può sembrare provenire dalla posizione di un evento visivo temporalmente coerente, benché la sorgente acustica sia collocata altrove. In alcuni casi l'affidabilità relativa dei segnali guida il peso attribuito a ciascuna modalità: quando un'informazione è meno precisa, il cervello può fare maggiore affidamento su un altro indizio. I modelli probabilistici di integrazione consentono di formalizzare questa strategia, ma devono essere confrontati con risultati reali, preferenze individuali e condizioni in cui le modalità non vengono integrate.
La rappresentazione del corpo fornisce esempi particolarmente suggestivi. Nell'illusione della mano di gomma, una mano artificiale visibile e la mano reale nascosta vengono talvolta stimolate in modo sincronizzato: alcuni partecipanti riferiscono la sensazione che la mano artificiale appartenga al proprio corpo o mostrano modificazioni in alcune stime di posizione. La procedura classica, attribuita a Botvinick e Cohen, non dimostra che la proprietà corporea dipenda soltanto da un singolo canale; evidenzia piuttosto una integrazione dinamica fra vista, tatto e rappresentazioni corporee. Gli effetti dipendono dall'esatta procedura, dal controllo delle stimolazioni e dalle misure adottate.
La sinestesia indica una famiglia di esperienze in cui uno stimolo di una modalità o categoria può evocare in modo relativamente stabile una qualità aggiuntiva, per esempio l'associazione automatica fra lettere e colori in alcune persone. È importante non confondere sinestesia con la semplice capacità di utilizzare metafore, né con un'allucinazione clinica. Le caratteristiche variano; molti studi impiegano la coerenza nel tempo delle associazioni come uno dei criteri di valutazione. Le spiegazioni neuroscientifiche propongono ruoli diversi per connessioni, disinibizione o apprendimento, ma la loro capacità di spiegare tutta la variabilità individuale è ancora materia di ricerca.
Sintesi interdisciplinare: percepire è agire in un corpo e in un ambiente
La percezione lega fisiologia, psicologia cognitiva, sviluppo e contesto culturale. Le stesse informazioni sensoriali che permettono di riconoscere una forma aiutano a controllare la presa della mano; le medesime conoscenze sul linguaggio facilitano il riconoscimento di parole udite in condizioni difficili. Differenze individuali di età, esperienza, abilità sensoriali e ambiente modificano le strategie disponibili. In medicina e riabilitazione, comprendere le modalità di compensazione può sostenere interventi; nell'architettura e nella progettazione digitale, conoscere i limiti della selezione attentiva aiuta a ridurre errori e barriere. Nessuno di questi impieghi giustifica il passaggio automatico da un singolo risultato di laboratorio a una prescrizione valida per tutte le persone.
Sviluppo e apprendimento dell'integrazione fra i sensi
La collaborazione fra modalità sensoriali non si presenta necessariamente in forma completa e immutabile fin dalla nascita. Durante lo sviluppo, il sistema nervoso apprende regolarità temporali e spaziali che collegano informazioni visive, tattili, uditive e motorie. Il movimento dell'organismo fornisce un contesto particolarmente ricco: guardare un oggetto mentre lo si raggiunge permette di confrontare cambiamenti dell'immagine con segnali di muscoli e articolazioni. Questo processo è importante per costruire rappresentazioni corporee e aspettative sulle conseguenze delle azioni.
Quando condizioni percettive cambiano in modo sistematico, possono intervenire forme di ricalibrazione sensoriale. Un osservatore può adattarsi progressivamente a una discrepanza fra direzione dei suoni e direzione apparente degli eventi, modificando giudizi successivi. Non tutte le ricalibrazioni sono uguali: alcune dipendono dalla durata dell'esposizione, altre dalla precisione dei segnali e dal compito. Per esaminare il meccanismo, bisogna misurare le risposte prima, durante e dopo l'alterazione, usando controlli che distinguano apprendimento, criterio decisionale e stanchezza.
Ambienti digitali, realtà virtuale e conflitti percettivi
I sistemi di realtà virtuale utilizzano segnali visivi e talvolta uditivi coerenti con un ambiente simulato, mentre il sistema vestibolare e i segnali corporei continuano a dipendere dal movimento reale. La divergenza può generare sensazioni di disagio o cinetosi, con marcata variabilità individuale. Alcune tecnologie riducono il disallineamento mediante maggiore precisione nella registrazione dei movimenti, adeguamento del tempo di aggiornamento delle immagini e scelte di progettazione che limitino movimenti visivi non corrispondenti a spostamenti fisici.
Gli effetti multisensoriali sono particolarmente importanti anche per l'accessibilità. Un'interfaccia che comunica un allarme solo mediante colore o suono può risultare inefficace per parte degli utilizzatori; aggiungere segnali visivi, tattili e testuali permette di sostenere la comunicazione in condizioni differenti. La ridondanza utile non equivale ad accumulare segnali in modo indiscriminato: segnali numerosi e conflittuali possono aumentare il carico attentivo. La progettazione deve identificare quali messaggi hanno priorità e verificare con test d'uso che la loro presentazione sia comprensibile e coerente.
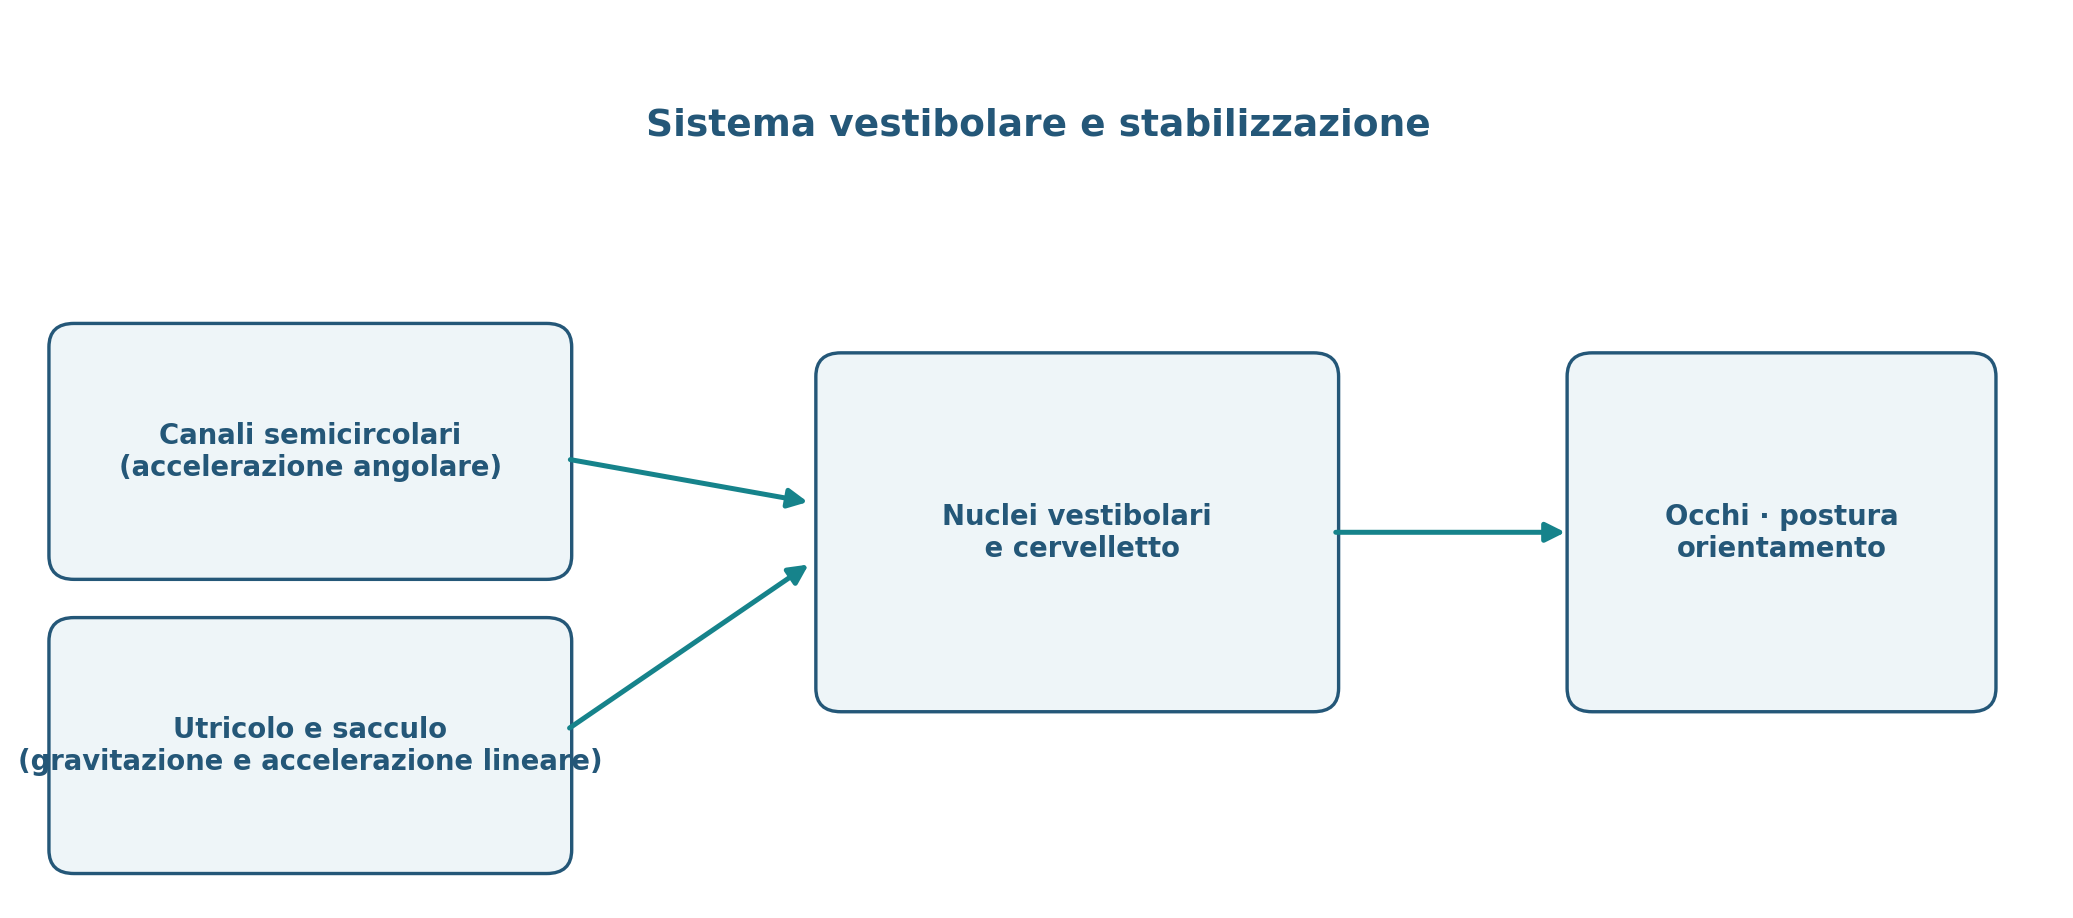
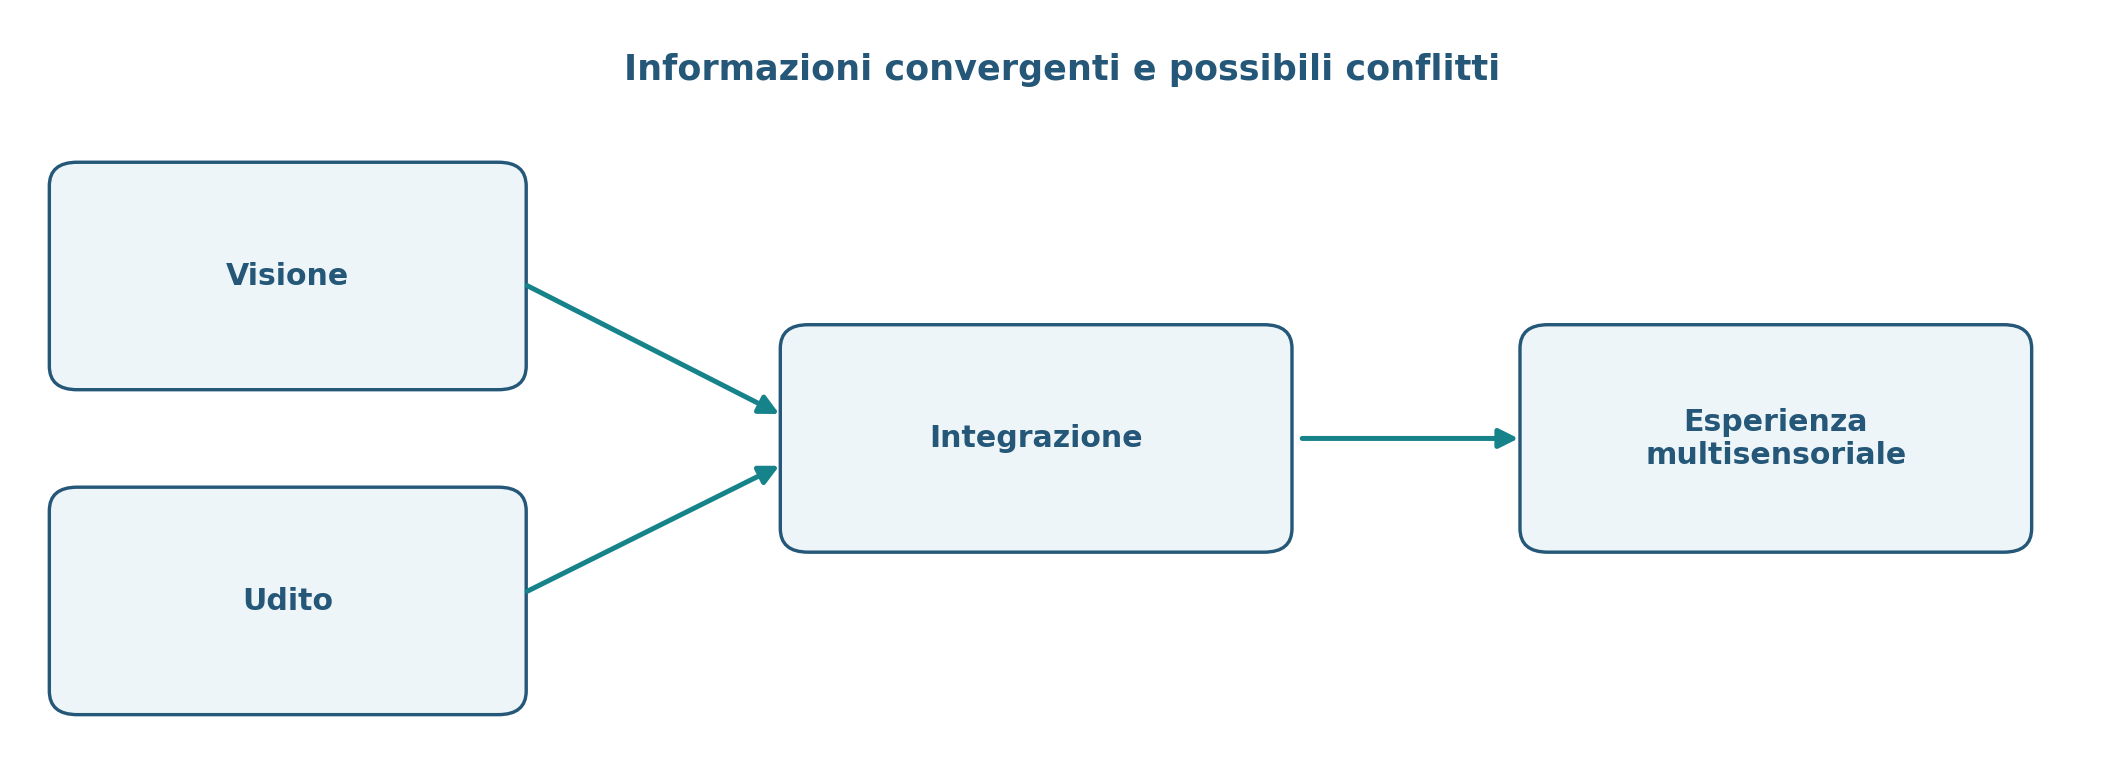
Tabella 4.7 — Integrazione multisensoriale e differenze percettive
Fenomeno | Modalità / condizioni | Osservazione importante |
|---|---|---|
McGurk | Disaccordo fra labbra e suono | Modifica possibile del fonema udito |
Effetto ventriloquo | Vista e udito con posizione diversa | Localizzazione sonora spostata |
Mano di gomma | Vista e tatto temporaneamente coerenti | Modifiche nella proprietà corporea riferita |
Sinestesia | Associazioni aggiuntive relativamente stabili | Non equivale a psicopatologia |
Errori comuni e falsi miti
“La percezione coincide con una registrazione fedele dello stimolo.” Non sempre. Le informazioni disponibili sono parziali e devono essere integrate con contesto, apprendimento e scopi dell'azione. Una rappresentazione costruita può risultare molto accurata senza essere una fotografia.
“Se un evento è visibile, chiunque lo noterà.” L'attenzione e gli obiettivi del compito possono impedire di riferire eventi imprevisti anche quando sono presenti nel campo visivo. Non si deduce però che ogni distrazione renda completamente ciechi.
“L'orecchio traduce tutte le frequenze in modo identico.” La coclea possiede un'organizzazione tonotopica e la sensibilità varia con frequenza, livello e condizioni fisiologiche. Il volume percepito non è proporzionale in modo semplice ai decibel.
“Le regioni della lingua sono specializzate esclusivamente in dolce, amaro, salato e acido.” Le principali qualità gustative possono essere rilevate in diverse regioni dotate di recettori appropriati. La classica mappa a zone esclusive è una rappresentazione fuorviante.
“Il dolore si misura direttamente dal danno ai tessuti.” Dolore e nocicezione sono correlati ma non identici. L'esperienza dolorosa comprende componenti sensoriali ed emotive e dipende da condizioni biologiche, psicologiche e sociali.
“Le illusioni dimostrano che i sensi non sono affidabili.” Invece illustrano soprattutto condizioni particolari in cui strategie generalmente utili portano a errori prevedibili. Il funzionamento quotidiano dei sistemi percettivi è spesso altamente efficace.
Sintesi ragionata
La sensazione ha origine dalla trasformazione di energie fisiche e interazioni chimiche in attività dei recettori, mentre la percezione emerge dall'organizzazione dei segnali in rappresentazioni capaci di guidare azioni e decisioni. Le misure psicofisiche mostrano che la rilevazione dipende da intensità, rumore, criteri e condizioni dell'osservazione. L'adattamento e le aspettative modulano la sensibilità e l'interpretazione; le illusioni e i fenomeni attentivi permettono di studiare tali meccanismi in situazioni controllate.
La visione utilizza meccanismi ottici, retina e reti cerebrali distribuite per elaborare colore, forma, oggetti, profondità e movimento. L'udito sfrutta la trasduzione delle vibrazioni cocleari e l'integrazione binaurale per riconoscere suoni, localizzarli e separarne le sorgenti. Tatto, temperatura, nocicezione e interocezione informano sul contatto con il mondo e sullo stato del corpo. Olfatto e gusto contribuiscono congiuntamente alla percezione del cibo e di segnali ambientali, mentre i sistemi vestibolare e propriocettivo partecipano a equilibrio e controllo motorio. La percezione multisensoriale integra queste informazioni secondo modalità flessibili, talvolta generando illusioni che rivelano la logica delle operazioni sottostanti.
La lezione generale è metodologica oltre che biologica: il fatto di conoscere lo stimolo non basta per predire l'esperienza individuale, così come il resoconto soggettivo non basta per identificare il processo fisico che l'ha prodotto. Per comprendere la percezione occorre collegare misure dello stimolo, risposte comportamentali, fisiologia, contesto e modelli esplicativi, mantenendo distinti ciò che è osservato e ciò che viene inferito.
Glossario di capitolo
Accomodazione. Adattamento della curvatura del cristallino per la messa a fuoco di oggetti a distanze diverse.
Adattamento sensoriale. Variazione della risposta sensoriale in seguito a una stimolazione continua o ripetuta.
Agnosia visiva. Alterazione del riconoscimento di oggetti visivi non riducibile a una semplice perdita di acuità.
Amacrina. Tipo di interneurone retinico che contribuisce all’elaborazione e alla modulazione dei segnali.
Analisi della scena uditiva. Organizzazione delle componenti acustiche in sorgenti ed eventi percepiti.
Anosmia. Perdita della funzione olfattiva, con caratteristiche e cause variabili.
Attenzione selettiva. Priorità attribuita a determinate informazioni a scapito di altre.
Bastoncelli. Fotorecettori retinici molto sensibili, importanti in condizioni di bassa illuminazione.
Bottom-up. Elaborazione guidata principalmente da caratteristiche dell’informazione in ingresso.
Campo recettivo. Regione o classe di stimoli che modifica la risposta di una cellula o di un’unità sensoriale.
Cecità al cambiamento. Difficoltà a rilevare una differenza fra scene quando viene interrotta la transizione visiva.
Cecità da inattenzione. Mancata rilevazione esplicita di uno stimolo inatteso mentre l’attenzione è occupata altrove.
Cellule bipolari. Interneuroni retinici che collegano fotorecettori e circuiti gangliari.
Cellule ciliate. Cellule sensoriali meccanosensibili nell’orecchio interno.
Cellule gangliari. Neuroni retinici i cui assoni formano il nervo ottico.
Chiasma ottico. Sede in cui parte delle fibre visive attraversa la linea mediana.
Cinetosi. Malessere associato a determinate condizioni di movimento e a discrepanze sensoriali.
Coclea. Struttura dell’orecchio interno che contribuisce a trasformare vibrazioni in segnali nervosi.
Congiunzione illusoria. Attribuzione erronea di caratteristiche visive a un oggetto diverso da quello di origine.
Coni. Fotorecettori coinvolti nella visione cromatica e nella discriminazione di dettagli.
Costanza di colore. Relativa stabilità dell’apparenza cromatica delle superfici sotto diverse illuminazioni.
Costanza di grandezza. Relativa stabilità della dimensione attribuita a un oggetto al variare della distanza.
Criterio decisionale. Soglia di evidenza adottata per scegliere fra risposte in condizioni di incertezza.
d-prime (d′). Indice di sensibilità nel modello classico della teoria della rilevazione del segnale.
Decibel. Unità logaritmica usata per esprimere rapporti fra grandezze acustiche.
Differenza appena percepibile. Variazione stimolatoria discriminabile secondo uno specifico criterio.
Disparità binoculare. Differenza fra proiezioni retiniche dei due occhi usata come indizio di profondità.
Effetto McGurk. Influenza dei movimenti visibili della bocca sulla percezione del parlato.
Effetto ventriloquo. Spostamento apparente della posizione di un suono verso una sorgente visiva associata.
Falsa rilevazione (falso allarme). Risposta positiva quando il segnale bersaglio è assente.
Figura-sfondo. Organizzazione di regioni percettive in oggetti delineati e superficie retrostante.
Flusso ottico. Distribuzione dei movimenti sull’immagine visiva durante lo spostamento dell’osservatore.
Fototrasduzione. Trasformazione della luce in variazioni elettrochimiche nei fotorecettori.
Fovea. Regione centrale retinica specializzata nella visione ad elevata acuità.
Frequenza sonora. Numero di oscillazioni per secondo, misurato in hertz.
Gemma gustativa. Unità di cellule coinvolte nella rilevazione di stimoli gustativi.
Gestalt. Tradizione che studia l’organizzazione delle configurazioni percettive.
Glomerulo olfattivo. Unità del bulbo olfattivo in cui convergono assoni e avvengono elaborazioni iniziali.
Hz. Hertz, unità di frequenza pari a un ciclo al secondo.
Illusione percettiva. Discrepanza sistematica fra misura fisica e interpretazione percettiva in condizioni determinate.
Integrazione multisensoriale. Combinazione di informazioni provenienti da più sistemi sensoriali.
Interocezione. Rappresentazione e regolazione neurale di segnali relativi allo stato interno del corpo.
Iperpolarizzazione. Spostamento del potenziale di membrana verso valori più negativi.
Ipoguesia. Riduzione della sensibilità gustativa.
Iposmia. Riduzione della capacità olfattiva.
Legge di Weber. Relazione approssimativa secondo cui la differenza discriminabile cresce in proporzione all’intensità di riferimento.
Luminanza. Grandezza fotometrica relativa alla luce emessa o riflessa in una direzione per unità di superficie apparente.
Meccanocettore. Recettore che risponde a deformazione o forza meccanica.
Membrana basilare. Struttura cocleare su cui si sviluppano onde meccaniche sensibili alla frequenza.
Movimento apparente. Esperienza di movimento suscitata da stimoli fissi presentati in successione.
Nocicezione. Processi neurali di rilevazione di stimoli potenzialmente lesivi.
Nucleo genicolato laterale. Nucleo talamico fondamentale in diverse vie visive.
Occlusione. Sovrapposizione visiva che informa sull’ordine di profondità delle superfici.
Omuncolo sensoriale. Raffigurazione schematica dell’organizzazione somatotopica corticale.
Organo del Corti. Struttura cocleare contenente cellule ciliate sensoriali.
Parallasse di movimento. Differenze nel movimento relativo delle immagini di oggetti posti a distanze diverse.
Percezione. Organizzazione e interpretazione dei segnali sensoriali in esperienze e rappresentazioni.
Propriocezione. Rappresentazione della posizione e del movimento corporeo.
Prosopagnosia. Compromissione specifica del riconoscimento dell’identità dei volti.
Psicofisica. Studio quantitativo del rapporto fra stimoli e risposte percettive.
Punto cieco. Regione del campo visivo corrispondente all’uscita del nervo ottico, priva di fotorecettori.
Recettore sensoriale. Elemento cellulare o molecolare che risponde a particolari stimoli.
Retina. Tessuto nervoso dell’occhio che elabora inizialmente le informazioni visive.
Rifrazione. Cambiamento di direzione della luce al passaggio fra mezzi ottici.
Rilevazione corretta. Risposta positiva quando un segnale bersaglio è effettivamente presente.
Saccade. Movimento oculare rapido che sposta il punto di fissazione.
Sensazione. Rilevazione ed elaborazione iniziale della stimolazione.
Sinestesia. Esperienza percettiva aggiuntiva relativamente stabile evocata da stimoli di altre categorie o modalità.
Sistema vestibolare. Sistema dell’orecchio interno che rappresenta accelerazioni e orientamento della testa.
Soglia assoluta. Intensità rilevata con una probabilità convenzionalmente definita.
Soglia differenziale. Differenza stimolatoria distinguibile secondo un criterio prestabilito.
Stereociglia. Proiezioni delle cellule ciliate sensibili alla deformazione meccanica.
Stereopsi. Percezione della profondità basata su differenze fra le proiezioni dei due occhi.
Stimolo distale. Oggetto o evento del mondo da cui proviene l’informazione sensoriale.
Stimolo prossimale. Segnale che raggiunge direttamente un organo sensoriale.
Timbro. Qualità percettiva del suono legata a composizione spettrale e temporale.
Tonotopia. Organizzazione spaziale delle risposte sonore secondo frequenze preferenziali.
Top-down. Elaborazione influenzata da conoscenze, contesto, aspettative e obiettivi.
Trasduzione. Trasformazione di uno stimolo fisico o chimico in una risposta cellulare.
Umami. Qualità gustativa associata ad alcuni composti, fra cui il glutammato.
Ventrale (via visiva). Rete visiva occipito-temporale impegnata anche nel riconoscimento di oggetti.
Visione periferica. Elaborazione di stimoli al di fuori della regione centrale del campo visivo.