
3. Neuroscienze e comportamento
Apertura — Un gesto semplice, milioni di operazioni
Una persona attraversa una strada e sente, improvvisamente, il suono di un clacson alla propria sinistra. Prima ancora di formulare una frase, orienta il capo, valuta quanto sia vicino il veicolo e modifica la direzione del passo. Pochi istanti dopo sente il cuore accelerato, prova sollievo e ricorda l'episodio. Nulla di quanto è avvenuto appartiene esclusivamente a una regione cerebrale o a una singola molecola. La risposta è il risultato di segnali trasmessi dagli organi di senso, circuiti di orientamento, controllo motorio, previsioni basate sull'esperienza, attività del sistema nervoso autonomo e valutazioni coscienti. La neuroscienza studia la materia vivente che rende possibili questi processi; la psicologia domanda inoltre come tali processi si manifestino in esperienze, scelte e relazioni.
Il cervello non è una macchina che accende una casella per ogni pensiero. È un sistema biologico dinamico: riceve informazioni, le trasforma, le confronta con la storia dell'organismo e modifica nel tempo le proprie connessioni. Comprendere la sua architettura richiede quindi un percorso che unisca scale differenti, dal movimento degli ioni attraverso la membrana di un neurone fino all'organizzazione delle reti che sostengono linguaggio e memoria. Conoscere una molecola non equivale a conoscere una decisione, così come conoscere la forma dei singoli componenti di un'orchestra non permette di prevedere tutta la musica. Il collegamento fra livelli è indispensabile, ma deve essere dimostrato e non semplicemente immaginato.
Obiettivi formativi. Al termine del capitolo il lettore sarà in grado di descrivere neuroni e cellule gliali; spiegare il potenziale di membrana, il potenziale d'azione e la trasmissione sinaptica; distinguere i principali neurotrasmettitori dai loro molteplici effetti; riconoscere le parti del sistema nervoso, i circuiti cerebrali e il sistema endocrino; interpretare correttamente genetica comportamentale, epigenetica e plasticità; confrontare gli strumenti per misurare e perturbare l'attività cerebrale; discutere i limiti delle inferenze neuroscientifiche e le implicazioni sociali della neurodiversità.
3.1 Cellule nervose, glia e organizzazione microscopica
Il tessuto nervoso è composto di cellule specializzate
Un neurone è una cellula eccitabile che integra segnali e può comunicare con altre cellule mediante variazioni elettriche e rilascio di sostanze chimiche. Per eccitabilità si intende la capacità della membrana di rispondere agli stimoli modificando il proprio stato elettrico. I neuroni condividono con altre cellule elementi essenziali, come una membrana lipidica, un nucleo contenente il DNA, mitocondri che contribuiscono alla produzione di energia e un apparato per sintetizzare proteine. La loro peculiarità non consiste nell'essere gli unici elementi attivi del cervello, ma nell'avere sviluppato strutture adatte alla comunicazione rapida e selettiva su distanze che, nell'organismo, possono essere molto grandi rispetto al diametro cellulare.
Nel neurone tipico il soma, o corpo cellulare, contiene il nucleo e gran parte degli organelli; i dendriti sono prolungamenti che ricevono numerosi segnali; l'assone è un prolungamento che conduce potenziali d'azione verso le terminazioni di uscita. Questa divisione descrive un modello utile, non una regola senza eccezioni. Esistono neuroni con morfologie assai differenti, compresi neuroni bipolari, pseudounipolari e cellule prive di un assone facilmente identificabile. Inoltre i dendriti non sono semplici cavi passivi: possiedono canali ionici e possono compiere elaborazioni locali che influenzano la risposta della cellula.
La direzione più comune della comunicazione è dalle regioni di ingresso verso l'assone e quindi verso altre cellule, ma le reti reali comprendono fenomeni di modulazione retrograda, trasmissione dendritica e circuiti ricorrenti. La sinapsi, definita in senso generale come punto funzionale di comunicazione fra cellule, non è sempre un collegamento fisso con un'intensità invariabile. Il numero, la disposizione e l'efficacia delle sinapsi cambiano durante lo sviluppo, in risposta all'attività e in alcune condizioni patologiche. Per questo una rappresentazione del neurone deve essere letta come schema funzionale, non come fotografia dell'intera diversità cellulare.
Le cellule gliali partecipano all'elaborazione
Le cellule gliali non vanno descritte come una colla inerte che tiene insieme i neuroni. Nel sistema nervoso centrale gli astrociti contribuiscono alla regolazione della composizione chimica extracellulare, al metabolismo, all'equilibrio degli ioni e alla gestione di alcuni neurotrasmettitori. Le loro proiezioni sono strettamente associate a sinapsi e vasi sanguigni. Anche quando si parla di sinapsi «tripartita», comprendente elementi presinaptici, postsinaptici e gliali, bisogna evitare la conclusione eccessiva che ogni sinapsi funzioni secondo un unico schema di segnalazione glia-neurone.
Gli oligodendrociti producono la mielina nel sistema nervoso centrale; le cellule di Schwann svolgono una funzione analoga in quello periferico. La mielina è un rivestimento ricco di lipidi che isola elettricamente segmenti dell'assone e aumenta l'efficienza della conduzione. Le microglia sono cellule immunitarie residenti, sensibili alle condizioni del tessuto nervoso: intervengono nella sorveglianza, nella risposta a danni e, durante specifiche fasi dello sviluppo, nei processi che rimodellano le connessioni. Queste funzioni non giustificano tuttavia affermazioni generiche secondo cui ogni esperienza stressante o ogni pensiero «attiverebbe l'infiammazione del cervello»; occorrono misure appropriate e un contesto biologico definito.
L'organizzazione microscopica del sistema nervoso dipende anche da cellule endoteliali, periciti e altre componenti che regolano i rapporti fra sangue e tessuto nervoso. La barriera ematoencefalica è un insieme di proprietà dei vasi cerebrali che limita e controlla il passaggio di molte sostanze. Non è una parete assolutamente impermeabile: acqua, nutrienti e segnali necessari alla fisiologia attraversano percorsi controllati. La sua selettività spiega perché un farmaco efficace su cellule isolate non raggiunga necessariamente concentrazioni utili nel cervello.
Tre classi funzionali e un limite della classificazione
In una distinzione didattica, i neuroni sensoriali veicolano segnali relativi all'ambiente esterno o allo stato corporeo, i neuroni motori contribuiscono a comandare muscoli e ghiandole, e gli interneuroni collegano e trasformano informazioni dentro circuiti locali o più ampi. Non bisogna immaginare che ogni neurone appartenga esclusivamente a una di queste tre categorie. Alcune cellule hanno funzioni di integrazione complesse, partecipano a numerose reti e cambiano il significato funzionale della propria attività in relazione al compito.
Si consideri il riflesso di retrazione della mano davanti a uno stimolo nocivo. Recettori periferici trasformano energia fisica in segnali, fibre afferenti raggiungono il midollo spinale, interneuroni coordinano risposte di più gruppi muscolari e motoneuroni attivano la contrazione. Il cervello riceve informazioni e contribuisce all'esperienza cosciente del dolore, ma alcuni aspetti della risposta motoria possono essere organizzati a livello spinale prima della valutazione deliberata. L'esempio mostra insieme una distribuzione di compiti e una continuità di comunicazione: il comportamento non si riduce alla sola corteccia cerebrale.
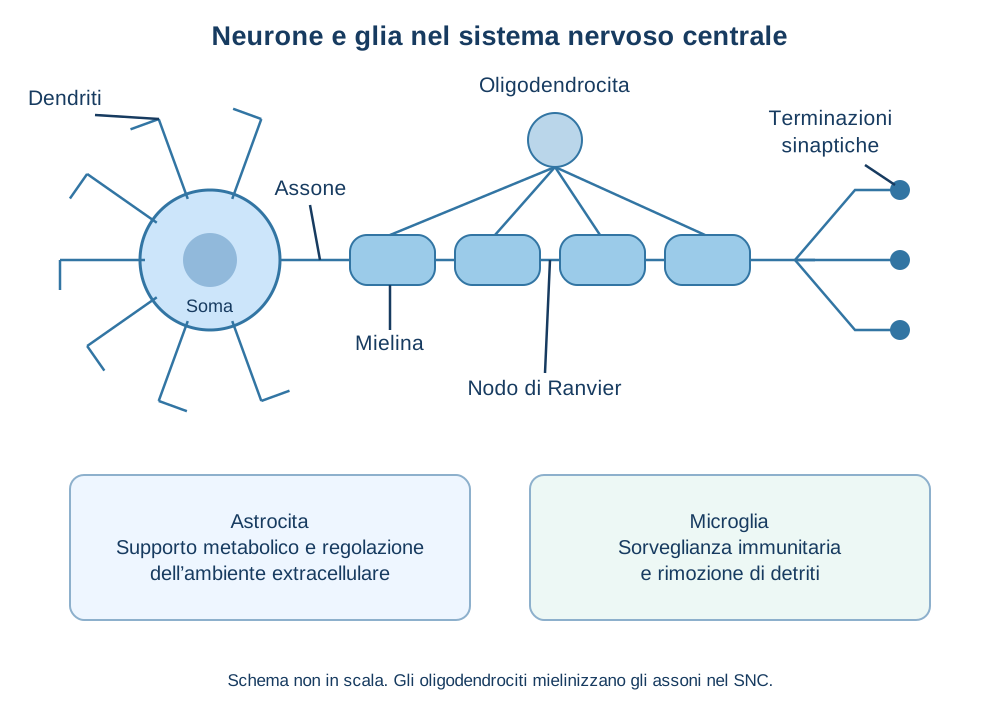
La figura 3.1 rappresenta neurone e principali tipi di glia in forma originale, con le approssimazioni dichiarate in didascalia.
Tabella 3.1 — Cellule del sistema nervoso: funzioni e precisazioni
Elemento | Ruolo prevalente | Precisazione |
|---|---|---|
Neurone | Integrazione e propagazione dei segnali | Morfologie e funzioni molto eterogenee |
Astrocita | Omeostasi, metabolismo e ambiente sinaptico | Non è un semplice tessuto di sostegno |
Oligodendrocita | Mielinizzazione nel SNC | Può sostenere più segmenti assonali |
Cellula di Schwann | Mielinizzazione nel SNP | Organizzazione differente da quella centrale |
Microglia | Sorveglianza immunitaria e rimodellamento | Attività regolata dal contesto biologico |
La tabella sintetizza distinzioni che vanno lette insieme alle spiegazioni del testo.
3.2 Membrana, gradienti elettrochimici e potenziale d'azione
Perché un neurone possiede un potenziale elettrico
Le cellule nervose mantengono concentrazioni differenti di ioni fra interno ed esterno. Gli ioni sono particelle dotate di carica elettrica; per la fisiologia neuronale sono particolarmente importanti sodio (Na+), potassio (K+), cloruro (Cl−) e calcio (Ca2+). La membrana cellulare è un doppio strato di lipidi nel quale sono inserite proteine che funzionano da canali e trasportatori. Non tutti gli ioni la attraversano liberamente: la permeabilità varia secondo il tipo di canale e il suo stato.
Una differenza di concentrazione genera una spinta alla diffusione; una differenza di carica produce invece una forza elettrica. Si parla di gradiente elettrochimico per indicare la risultante delle due tendenze. A riposo la membrana di molti neuroni ha un potenziale interno negativo rispetto all'esterno, spesso nell'ordine di −70 millivolt, pur con differenze importanti fra tipi cellulari e condizioni fisiologiche. Tale valore non deriva semplicemente dall'azione diretta di una pompa che «inietta elettricità». Dipende soprattutto dalla permeabilità selettiva della membrana e dai gradienti ionici, che vengono mantenuti nel tempo anche da sistemi di trasporto attivo.
La pompa sodio-potassio ATPasi utilizza energia derivata dall'ATP, una molecola che trasferisce energia nei processi cellulari, per spostare tipicamente tre ioni sodio verso l'esterno e due ioni potassio verso l'interno per ciclo. Essa contribuisce al mantenimento dei gradienti ed è elettrogenica, ma il potenziale di riposo dipende in misura sostanziale anche dai canali di perdita, particolarmente importanti per il potassio. Conviene quindi distinguere la riserva energetica che sostiene il sistema dalla distribuzione istantanea delle correnti attraverso la membrana.
Dalla depolarizzazione al segnale propagato
Una depolarizzazione rende meno negativo il potenziale della membrana, mentre una iperpolarizzazione lo sposta verso valori più negativi rispetto al riferimento considerato. Se l'attivazione integrata nella regione di innesco supera una soglia sufficiente, possono aprirsi rapidamente canali del sodio voltaggio-dipendenti. L'ingresso di sodio favorisce un'ulteriore depolarizzazione, in un ciclo rigenerativo che genera il potenziale d'azione. In seguito, l'inattivazione di numerosi canali del sodio e l'aumento della conduttanza per il potassio contribuiscono alla ripolarizzazione; in alcuni neuroni si osserva una fase transitoria di iperpolarizzazione.
La definizione di soglia è operativa e dipende dalla dinamica dei canali; non è un pulsante universale che scatta sempre alla medesima tensione. Una volta innescato, il segnale viaggia lungo l'assone rigenerandosi in regioni adiacenti. La legge del tutto o nulla descrive il fatto che il singolo potenziale d'azione, in un tratto di membrana e in condizioni fisiologiche confrontabili, non diventa proporzionalmente più grande perché lo stimolo è più intenso. Ciò non significa che il sistema nervoso abbia soltanto risposte «sì» o «no»: l'informazione può essere rappresentata dalla frequenza, dal momento e dalla distribuzione dei potenziali d'azione in popolazioni di neuroni.
Durante il periodo refrattario assoluto è molto difficile o impossibile generare un secondo potenziale d'azione nello stesso segmento, principalmente per lo stato di inattivazione dei canali del sodio; nel periodo refrattario relativo può essere necessario uno stimolo maggiore del consueto. I periodi refrattari contribuiscono a limitare la frequenza dei segnali e favoriscono, nella fisiologia ordinaria, la propagazione lungo l'assone anziché un continuo rimbalzo del fronte attivo.
Mielina e conduzione saltatoria
Negli assoni mielinizzati il potenziale d'azione viene rigenerato soprattutto presso i nodi di Ranvier, brevi segmenti privi di mielina ad alta densità di canali voltaggio-dipendenti. La corrente si propaga rapidamente sotto le regioni mielinizzate e il segnale appare procedere «a salti» da un nodo al successivo: è la conduzione saltatoria. In realtà nessuna particella elettrica attraversa istantaneamente l'intero spazio fra due nodi; la metafora del salto descrive la distribuzione dei punti dove il potenziale viene rigenerato.
La velocità di conduzione dipende da più proprietà, fra cui diametro dell'assone, mielinizzazione, temperatura e caratteristiche dei canali. Un assone più spesso, a parità di altre condizioni, presenta in genere minore resistenza interna al passaggio di corrente. La mielina contribuisce diminuendo le perdite e modificando le proprietà capacitive della membrana. Per questo lesioni della mielina possono alterare la trasmissione, ma dalla sola presenza di un cambiamento nella mielinizzazione non si può prevedere automaticamente quale esperienza psicologica ne deriverà.
Il modello di Hodgkin e Huxley: una conquista e i suoi confini
Nel 1952 Alan Hodgkin e Andrew Huxley formalizzarono matematicamente il modo in cui correnti ioniche dipendenti dalla tensione possono produrre un potenziale d'azione. Le loro ricerche sul grande assone del calamaro erano favorite dall'accessibilità sperimentale di una fibra di dimensioni relativamente elevate. Attraverso tecniche di controllo della tensione di membrana e misurazione delle correnti, il programma di ricerca identificò una dinamica compatibile con contributi distinti di sodio e potassio. Il risultato non consistette soltanto in una descrizione grafica, ma in un sistema di equazioni capace di prevedere l'andamento temporale del segnale in condizioni definite.
In una forma semplificata, la corrente di membrana comprende una componente capacitiva e correnti ioniche: I = C_m (dV/dt) + I_ion, con convenzioni di segno da dichiarare. Il termine capacitivo rappresenta la capacità della membrana di accumulare separazioni di carica; I_ion riassume le correnti dovute ai canali. Nel modello completo tali correnti dipendono dalla tensione, da potenziali di equilibrio e da variabili che descrivono apertura e inattivazione dei canali. Non è necessario padroneggiare l'intero sistema di equazioni per comprendere il risultato concettuale: un evento elettrico apparentemente unitario può emergere da più processi fisici combinati.
Il modello non riproduce automaticamente tutte le tipologie di neuroni umani né spiega da solo memoria, emozioni e coscienza. Rimane però un caso esemplare di spiegazione meccanicistica: separa componenti misurabili, formula previsioni quantitative e permette di verificare dove le osservazioni non corrispondono alle attese. La figura 3.2 presenta un andamento puramente illustrativo del potenziale d'azione, non il tracciato di un particolare esperimento storico.
Una lettura quantitativa del potenziale di equilibrio
Una descrizione fisica più accurata del potenziale di membrana richiede di distinguere il movimento di un singolo tipo di ione dall'insieme delle correnti. Per uno ione con carica z, il potenziale di equilibrio può essere descritto, in condizioni appropriate, mediante l'equazione di Nernst: E_ione = (RT/zF) ln([ione]esterno/[ione]interno). R è la costante universale dei gas, T la temperatura assoluta, F la costante di Faraday e ln il logaritmo naturale. L'equazione rappresenta il potenziale al quale la forza elettrica bilancia quella dovuta al gradiente di concentrazione di quello ione. Non implica che ogni membrana abbia davvero tale potenziale: in una cellula reale più specie ioniche attraversano contemporaneamente canali differenti.
Consideriamo un esempio didattico con concentrazioni ipotetiche. Se il potassio ha una concentrazione molto più elevata all'interno che all'esterno, tende a diffondere verso l'esterno quando si aprono canali che lo permettono. L'uscita di cariche positive rende però relativamente più negativo l'interno, generando una forza elettrica che si oppone a ulteriori uscite. Al potenziale di equilibrio le spinte si bilanciano. Per il sodio, con un gradiente tipicamente opposto, la direzione delle forze e il potenziale di equilibrio sono diversi. Il potenziale di riposo si colloca quindi, in senso intuitivo, fra più potenziali di equilibrio, pesati dalle permeabilità dei canali attivi.
Nello studio di membrana si incontra spesso anche la conduttanza, grandezza che quantifica quanto facilmente una corrente passa attraverso una via; è inversa della resistenza. Per una componente ionica, la corrente può essere rappresentata mediante I_ione = g_ione (V − E_ione), dove V è il potenziale di membrana, E_ione il potenziale di equilibrio e g_ione la conduttanza. Il termine V − E_ione viene detto forza elettromotrice o driving force: se è nullo, la corrente netta di quello ione può essere nulla anche in presenza di canali aperti. Questo chiarisce una distinzione spesso trascurata: un canale aperto non garantisce una corrente di intensità e direzione costanti, perché l'effetto dipende anche dalla differenza fra potenziale di membrana e potenziale di equilibrio.
Le due espressioni non sostituiscono il modello completo della cellula. La concentrazione degli ioni può cambiare, le conduttanze dipendono dalla tensione e dall'attività, e i dendriti possiedono una geometria complessa. Servono però a capire perché due sinapsi che aprono canali differenti possono influenzare la probabilità di generare un segnale in modo diverso. Un evento inibitorio, per esempio, può anche agire limitando l'effetto di ingressi eccitatori attraverso un aumento della conduttanza, senza richiedere sempre una vistosa iperpolarizzazione.
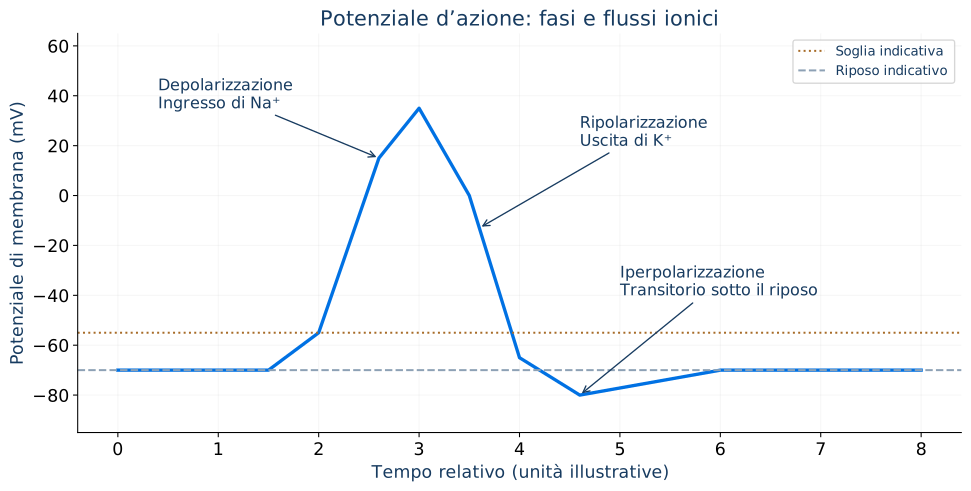
La figura 3.2 rappresenta fasi indicative di un potenziale d’azione in forma originale, con le approssimazioni dichiarate in didascalia.
3.3 Sinapsi, recettori e neurotrasmettitori
Come passa l'informazione fra cellule
Nella sinapsi chimica l'arrivo di un potenziale d'azione alla terminazione presinaptica apre canali del calcio sensibili alla tensione. L'ingresso di calcio favorisce la fusione di vescicole con la membrana e il rilascio di neurotrasmettitori nella fessura sinaptica, uno spazio molto piccolo fra le due cellule. Le molecole diffuse possono legarsi a recettori sulla cellula postsinaptica e modificarne la conduttanza elettrica, la cascata biochimica intracellulare o l'efficacia di successive risposte. La sequenza richiede energia e dipende da molte proteine: non equivale a un semplice contatto fra due fili metallici.
I recettori ionotropici sono canali che si aprono o chiudono in risposta al legame del trasmettitore e possono produrre effetti relativamente rapidi. I recettori metabotropici, spesso associati a proteine G, attivano processi intracellulari in grado di modulare proprietà cellulari su scale temporali anche più prolungate. La distinzione non coincide con «stimolante» e «calmante». Una stessa molecola può produrre effetti differenti secondo il recettore, il tipo cellulare, lo stato del circuito e il momento in cui viene rilasciata.
Un potenziale postsinaptico eccitatorio aumenta in un determinato contesto la probabilità che il neurone generi un potenziale d'azione; un potenziale inibitorio tende a ridurla o a limitare particolari effetti dell'eccitazione. Il significato funzionale dipende in parte dal potenziale di equilibrio degli ioni coinvolti e dallo stato della membrana. Un segnale non si classifica in modo definitivo osservando soltanto quale neurotrasmettitore viene rilasciato. In certe fasi dello sviluppo, per esempio, gli effetti del GABA possono differire da quelli tipicamente osservati in neuroni maturi.
Integrazione temporale e spaziale
Un neurone può ricevere simultaneamente migliaia di input. La sommazione temporale descrive l'accumulo di effetti sinaptici che arrivano in successione ravvicinata; la sommazione spaziale riguarda l'integrazione di segnali provenienti da diversi punti della cellula. Ma l'integrazione non è sempre una semplice addizione aritmetica. La posizione delle sinapsi, la geometria dendritica e la presenza di canali attivi fanno sì che due input di uguale ampiezza possano influire diversamente sull'innesco del segnale.
L'attività sinaptica termina o cambia perché i neurotrasmettitori vengono rimossi dalla fessura tramite ricaptazione attraverso trasportatori, degradazione enzimatica o diffusione, con pesi differenti secondo il sistema. L'acetilcolina, per esempio, può essere degradata rapidamente dall'acetilcolinesterasi in determinate sinapsi; molti sistemi monoaminergici dipendono invece in modo rilevante dai trasportatori di ricaptazione. Capire come si esaurisce un segnale è importante quanto spiegare come nasce, poiché farmaci e sostanze psicoattive possono modificare proprio questi passaggi.
Una mappa chimica senza leggende eccessive
Il glutammato è il principale neurotrasmettitore eccitatorio rapido in numerose sinapsi del sistema nervoso centrale, mentre il GABA è fondamentale per molte trasmissioni inibitorie. La glicina contribuisce all'inibizione soprattutto in alcune regioni del midollo e del tronco encefalico. L'acetilcolina interviene, fra l'altro, nella giunzione neuromuscolare, nel sistema autonomo e in circuiti centrali legati all'attenzione. La dopamina contribuisce al controllo motorio, alla modulazione della motivazione e all'apprendimento legato a esiti e ricompense. Noradrenalina e serotonina partecipano alla regolazione di numerosi processi, inclusi vigilanza, attenzione, umore e modalità di risposta a stimoli rilevanti. I neuropeptidi, come alcuni oppioidi endogeni, agiscono come messaggeri che modificano il funzionamento dei circuiti.
Questa descrizione è deliberatamente più complessa degli slogan presenti in molta divulgazione. La dopamina non è «la molecola della felicità»: una risposta dopaminergica può segnalare aspetti della previsione di ricompensa, dell'apprendimento o della motivazione e non coincide necessariamente con il piacere soggettivo. La serotonina non è un termostato lineare dell'umore: diversi recettori e circuiti hanno funzioni differenti. Nemmeno è corretto dedurre che un comportamento si spieghi con l'eccesso o il difetto di un singolo trasmettitore sulla sola base di un sintomo psicologico.
Le sinapsi elettriche, costituite da giunzioni comunicanti che permettono il passaggio diretto di corrente fra cellule, rappresentano un'altra modalità di collegamento. In alcuni circuiti favoriscono sincronizzazione e comunicazione molto rapida. La presenza contemporanea di trasmissione chimica ed elettrica mostra quanto il sistema nervoso impieghi soluzioni diverse per esigenze di elaborazione diverse.
Dall'integrazione di un neurone al codice di una popolazione
Quando si registra l'attività elettrica di una sola cellula si vede soltanto una minuscola parte del sistema. In molte situazioni l'informazione emerge dalla distribuzione delle risposte di numerosi neuroni, chiamata codifica di popolazione. Un neurone visivo può rispondere maggiormente a un orientamento, ma questo non significa che abbia un'etichetta interna che dice «linea verticale»; il suo contributo è interpretabile entro reti che combinano numerose preferenze, attività spontanea e stati attentivi. La statistica delle risposte, la variabilità fra prove e l'interazione fra segnali sono parti del fenomeno da spiegare.
I neuroni possono inoltre modificare l'eccitabilità senza produrre immediatamente un potenziale d'azione. Correnti dendritiche, adattamento di frequenza, neuromodulazione e inibizione locale cambiano il modo in cui la cellula trasforma gli input. I circuiti non sono perciò una catena di interruttori identici, ma sistemi che cambiano nel tempo. Il concetto di guadagno neurale indica, in senso generale, quanto cambia la risposta di una cellula o rete al variare dell'input. Attenzione e stato di vigilanza possono modificare questo guadagno, senza necessariamente alterare le proprietà fisiche dello stimolo.
La correlazione fra attività di neuroni diversi va interpretata con cautela. Una correlazione può derivare da connessioni dirette, input condivisi, oscillazioni comuni o variazioni del compito. La sincronizzazione di alcune attività può avere conseguenze per il coordinamento delle reti, ma non si deve dedurre che una particolare frequenza registrata sul cuoio capelluto sia un indicatore infallibile di creatività, rilassamento o capacità intellettiva. Anche le frequenze dell'EEG hanno significati differenti secondo età, sonno, farmaci e regione di origine.
Un esercizio concettuale: dal neurone alla scelta
Una persona vede due pulsanti e deve premerne uno quando compare un segnale. Un neurone sensoriale può rispondere al contrasto; popolazioni in più regioni integrano la presenza dello stimolo, l'attenzione e le istruzioni; circuiti motori preparano un'azione, mentre segnali di feedback informano il sistema dell'esito. Se si rileva una risposta più rapida al pulsante sinistro, non si può attribuirla direttamente a una singola regione: differenze nelle aspettative, nella posizione dei pulsanti o nella pratica possono contribuire. Questo è il motivo per cui studi neuroscientifici e psicologici devono condividere variabili e controlli descritti con precisione.
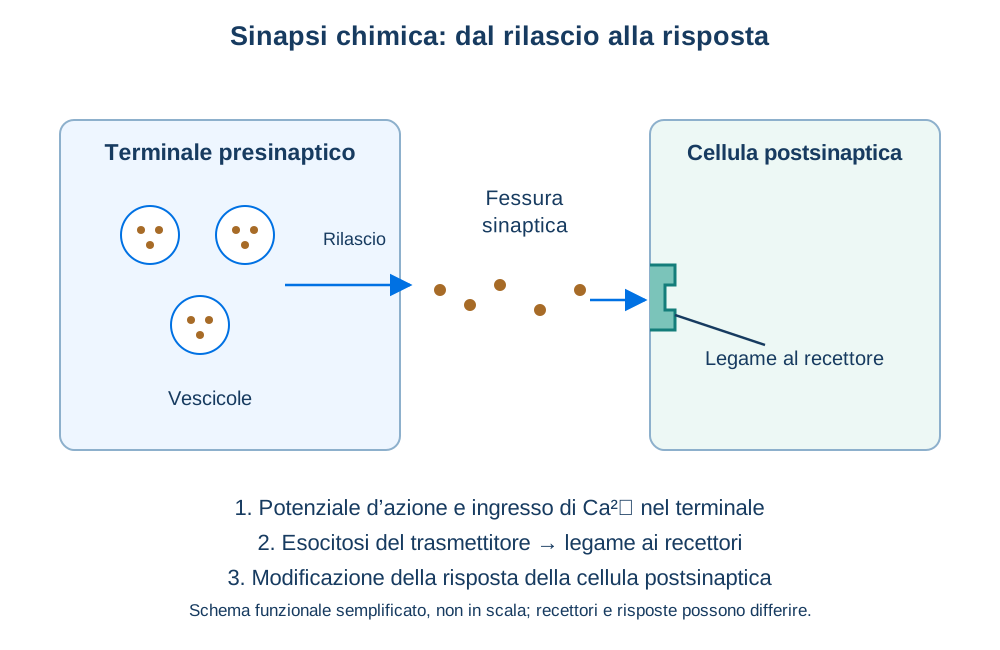
La figura 3.3 rappresenta schema funzionale di una sinapsi chimica in forma originale, con le approssimazioni dichiarate in didascalia.
Tabella 3.2 — Neurotrasmettitori e sistemi: una guida non riduzionista
Molecola | Ruoli rilevanti | Cautela interpretativa |
|---|---|---|
Glutammato | Numerose sinapsi eccitatorie centrali | Non è sinonimo di eccitazione psicologica |
GABA | Molte trasmissioni inibitorie | Gli effetti dipendono da cellule e condizioni |
Acetilcolina | Contrazione neuromuscolare; attenzione; autonomo | Recettori differenti |
Dopamina | Movimento, previsione di esiti, motivazione | Non equivale al piacere soggettivo |
Noradrenalina | Vigilanza e regolazione attentiva | Non codifica una singola emozione |
Serotonina | Modulazione di numerose funzioni | Nessuna equazione lineare serotonina=felicità |
Neuropeptidi | Regolazione e modulazione lenta | Effetti diversi secondo recettori e circuiti |
La tabella sintetizza distinzioni che vanno lette insieme alle spiegazioni del testo.
3.4 Farmaci, psicotropi e segnalazione neurale
Agonisti, antagonisti e modulazione
Una sostanza può modificare la comunicazione neuronale senza limitarsi a «imitare» o «bloccare» un neurotrasmettitore. Un agonista attiva un recettore producendo una risposta; un antagonista si lega senza attivarlo e ostacola, in condizioni appropriate, l'azione degli agonisti. Un agonista parziale può attivare un recettore con efficacia inferiore a quella di un agonista pieno; un modulatore allosterico agisce su una regione diversa dal sito principale di legame e modifica la risposta del recettore ad altre molecole. I farmaci possono inoltre interferire con sintesi, liberazione, trasporto, degradazione o canali ionici.
Per esempio, alcune benzodiazepine potenziano gli effetti del GABA su specifici recettori GABA_A; non sono semplicemente molecole che «aggiungono GABA». Diversi antidepressivi, fra cui gli inibitori selettivi della ricaptazione della serotonina, aumentano la disponibilità del trasmettitore presso alcune sinapsi attraverso il blocco del trasportatore: il fatto farmacologico immediato non equivale però a una spiegazione esaustiva degli effetti terapeutici osservabili dopo settimane. Questi dipendono da ulteriori adattamenti biologici, processi psicologici e differenze individuali, e non sono identici in ogni paziente.
Dose, tempo e circuito
La relazione fra dose ed effetto non è sempre proporzionale. Una sostanza può produrre benefici a certe dosi e rischi importanti ad altre, mostrare interazioni con altri farmaci e avere conseguenze diverse dopo somministrazioni ripetute. Tolleranza indica che, in determinate condizioni, una quantità prima efficace produce un effetto ridotto; astinenza indica un insieme di manifestazioni conseguenti alla diminuzione o interruzione di una sostanza dalla quale l'organismo ha sviluppato dipendenza fisiologica. Dipendenza in senso clinico non coincide né con qualunque adattamento farmacologico né con il semplice uso di un medicinale prescritto: richiede valutazioni dei comportamenti e delle conseguenze secondo criteri clinici appropriati.
Molti farmaci non raggiungono tutti i neuroni nella stessa concentrazione e il loro effetto clinico non è ricavabile dalla sola lista dei recettori. Anche lo stato della persona conta: sonno, infiammazione, esperienze precedenti e altre terapie possono influenzare risposta e tollerabilità. Una diagnosi psicologica non può quindi essere dedotta da un presunto squilibrio di un'unica molecola, e nessuna indicazione terapeutica individuale deriva automaticamente dalla descrizione di un meccanismo biochimico.
Perché la neurochimica non esaurisce la psicologia
Immaginiamo due persone che ricevono il medesimo stimolo stressante. Le vie noradrenergiche e gli ormoni possono contribuire in entrambi i casi alla mobilitazione dell'organismo; tuttavia l'interpretazione della situazione, i ricordi e il supporto sociale influenzano la risposta e il comportamento. Il passaggio da una molecola a un'emozione richiede sempre un modello intermedio del circuito e del contesto. Le relazioni tra livelli non rendono «meno biologico» l'apprendimento: al contrario, mostrano che l'esperienza è una delle condizioni attraverso cui il sistema biologico opera e si trasforma.
3.5 Organizzazione del sistema nervoso centrale e periferico
Una distinzione anatomica, molte interdipendenze
Il sistema nervoso centrale (SNC) comprende encefalo e midollo spinale; il sistema nervoso periferico (SNP) comprende nervi e gangli esterni al sistema centrale. L'encefalo non coincide soltanto con i grandi emisferi cerebrali: include anche cervelletto e tronco encefalico. Il midollo spinale non è un fascio di cavi inerti, perché contiene circuiti capaci di integrare segnali sensoriali e organizzare risposte motorie. Un nervo è un insieme di assoni e tessuti di sostegno; un ganglio, nel contesto periferico, è un raggruppamento di corpi cellulari. Nel SNC raggruppamenti di corpi cellulari possono essere chiamati nuclei, senza confondere questo significato con il nucleo intracellulare che contiene il DNA.
La divisione periferica comprende vie afferenti, che portano informazioni sensoriali verso le regioni centrali, e vie efferenti, che trasmettono comandi verso organi effettori. Per ricordare la differenza, si può associare l'afferenza all'arrivo e l'efferenza all'uscita dei segnali. È una direzione funzionale, non un giudizio d'importanza. Un cervello privo di segnali periferici sarebbe gravemente limitato nel monitorare il proprio corpo e l'ambiente; un sistema periferico privo di integrazione centrale perderebbe gran parte della coordinazione necessaria ai comportamenti flessibili.
Il sistema nervoso somatico è coinvolto nella sensibilità della cute e di diversi apparati sensoriali e nel controllo dei muscoli scheletrici. Il sistema nervoso autonomo regola molte funzioni viscerali, come frequenza cardiaca, digestione e sudorazione; le sue componenti possono essere modulate anche da processi emotivi e cognitivi. È utile distinguere questi sottosistemi, ma sarebbe scorretto chiamare il primo completamente volontario e il secondo completamente indipendente dalla mente: posture, riflessi e controllo vegetativo mostrano una gradazione complessa fra automatismi e influenze deliberative.
Il midollo spinale come dispositivo di integrazione
La sostanza grigia è costituita in buona parte da corpi cellulari, dendriti e connessioni locali; la sostanza bianca contiene numerose fibre mielinizzate. Nel midollo spinale le due componenti hanno una distribuzione diversa da quella osservata nella corteccia cerebrale. Le vie ascendenti trasportano informazioni relative a tatto, posizione corporea, dolore e altre modalità; le vie discendenti contribuiscono a modificare il comportamento di motoneuroni e interneuroni. Ogni via deve essere descritta secondo origine, destinazione e funzione: espressioni vaghe come «il segnale sale al cervello» occultano i passaggi dove avviene una prima elaborazione.
Nel riflesso rotuleo, la percussione del tendine sotto la rotula stira un muscolo e attiva recettori sensoriali specializzati, i fusi neuromuscolari. Le afferenze raggiungono il midollo, dove influenzano motoneuroni che contribuiscono alla contrazione; circuiti inibitori coordinano l'azione dei muscoli antagonisti. L'esame clinico del riflesso consente alcune osservazioni sulla funzionalità del circuito, ma una risposta insolita non determina da sola la sede e la natura di una lesione senza un'indagine più ampia.
Protezione, vasi e liquido cerebrospinale
Il sistema nervoso centrale è protetto dal cranio, dalla colonna vertebrale e dalle meningi, membrane che avvolgono encefalo e midollo. Il liquido cerebrospinale circola nelle cavità ventricolari e nello spazio subaracnoideo, contribuendo alla protezione meccanica e a scambi fisiologici. L'encefalo necessita di un rifornimento continuo di ossigeno e glucosio: la sua attività elettrica, per quanto rappresentata spesso come puro «pensiero», è strettamente legata al metabolismo. Le modifiche del flusso sanguigno diventeranno decisive quando esamineremo la risonanza magnetica funzionale, la quale misura soprattutto conseguenze emodinamiche associate all'attività neurale, non pensieri fotografati direttamente.
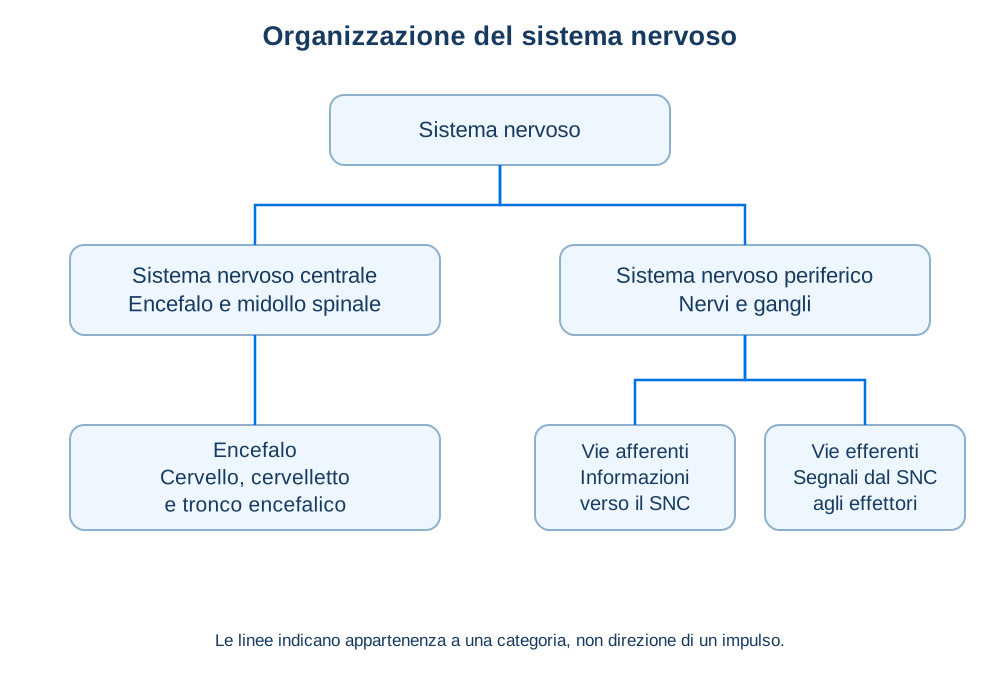
La figura 3.4 rappresenta organizzazione del sistema nervoso in forma originale, con le approssimazioni dichiarate in didascalia.
Tabella 3.3 — Principali strutture e circuiti cerebrali
Regione | Funzioni studiate | Limite della localizzazione |
|---|---|---|
Tronco encefalico | Vigilanza, vie sensoriali/motorie, funzioni vitali | Circuiti collegati con tutto il sistema |
Cervelletto | Coordinazione, apprendimento motorio, temporizzazione | Coinvolto anche in alcune funzioni cognitive |
Talamo | Elaborazione e collegamento corticale | Nuclei funzionalmente differenti |
Ipotalamo | Omeostasi e regolazione ormonale | Controllo integrato con organi periferici |
Amigdala | Rilevanza di stimoli e apprendimento emotivo | Non un unico centro della paura |
Ippocampo | Memoria episodica e spazio | Non archivio unico dei ricordi |
Nuclei della base | Selezione di azioni e abitudini | Circuiti cortico-sottocorticali distribuiti |
Corteccia prefrontale | Controllo flessibile e pianificazione | Nessuna singola sede delle funzioni esecutive |
La tabella sintetizza distinzioni che vanno lette insieme alle spiegazioni del testo.
3.6 Tronco encefalico, cervelletto e circuiti sottocorticali
La regolazione delle funzioni vitali
Il tronco encefalico comprende, nelle classificazioni anatomiche più comuni, bulbo o midollo allungato, ponte e mesencefalo. Contiene importanti nuclei e vie che contribuiscono al controllo respiratorio, cardiovascolare, alla vigilanza, ai riflessi e a molte funzioni sensoriali e motorie. Dire che il tronco «mantiene in vita» l'organismo è utile solo come prima semplificazione; in realtà queste funzioni emergono da circuiti estesi che comprendono anche midollo spinale, ipotalamo e segnali periferici. Una lesione di una regione può avere esiti molto diversi secondo dimensioni, localizzazione precisa e strutture coinvolte.
La formazione reticolare indica una rete di nuclei e connessioni distribuiti nel tronco, parte dei quali partecipano alla regolazione della vigilanza e degli stati di sonno e veglia. Il locus coeruleus, situato nel ponte, è una fonte importante di proiezioni noradrenergiche e contribuisce a modulare attenzione e risposta a eventi rilevanti. I nuclei del rafe, distribuiti lungo il tronco, comprendono importanti popolazioni neuronali serotoninergiche. Non esiste tuttavia un singolo «centro della veglia» o «centro della paura» che operi indipendentemente dalle altre regioni.
Il cervelletto non serve soltanto all'equilibrio
Il cervelletto, collocato dorsalmente rispetto al tronco, è implicato nella coordinazione, nella temporizzazione, nell'apprendimento motorio e nell'adattamento dei movimenti. Quando una persona impara a raggiungere con precisione un oggetto o a compensare una perturbazione del movimento, circuiti cerebellari possono contribuire a rilevare errori e aggiornare il controllo. La sua architettura comprende circuiti relativamente regolari, ma la sua funzione non è riducibile a un unico algoritmo semplice.
Ricerche contemporanee hanno evidenziato connessioni del cervelletto anche con reti coinvolte in linguaggio, attenzione e altri aspetti cognitivi. Questi risultati non autorizzano a sostenere che esso «contenga» da solo la creatività o la personalità. Indicano piuttosto che processi comunemente associati alle aree corticali dipendono anche da circuiti di coordinazione distribuiti. Un sintomo clinico osservato dopo lesioni cerebellari può quindi riguardare il movimento, ma talvolta anche capacità non motorie; servono comunque valutazioni cliniche precise per attribuire una particolare difficoltà a una determinata alterazione.
Talamo e ipotalamo: collegare informazioni e bisogni
Il talamo comprende numerosi nuclei con connessioni distinte. Diverse informazioni sensoriali raggiungono la corteccia passando attraverso nuclei talamici, e numerosi circuiti cortico-talamici contribuiscono a modulare attenzione e elaborazione. L'olfatto primario costituisce un'eccezione alla descrizione troppo generale del talamo come tappa obbligatoria prima della corteccia primaria. Il talamo non è dunque un semplice interruttore: la sua attività seleziona, sincronizza e trasforma segnali nell'ambito di circuiti ricorrenti.
L'ipotalamo è una struttura relativamente piccola, ma importante per l'omeostasi, cioè il mantenimento di condizioni fisiologiche entro intervalli funzionali. Partecipa a controllare temperatura corporea, assunzione di cibo e acqua, ritmi biologici, risposte endocrine e autonomiche. Comunica con l'ipofisi, una ghiandola che libera ormoni in circolo e regola l'attività di altri organi endocrini. La fame, per esempio, non deriva da un singolo valore ematico interpretato da una sola cellula: segnali metabolici, ormoni intestinali, apprendimenti e ambiente sociale partecipano alla regolazione del comportamento alimentare.
Amigdala, ippocampo e nuclei della base
L'amigdala è un insieme di nuclei che intervengono, fra le altre cose, nell'apprendimento del significato emotivo degli stimoli e nella valutazione della loro rilevanza. Definirla esclusivamente «centro della paura» è inesatto: la sua attività dipende da compiti, segnali e connessioni, e può essere coinvolta anche nell'elaborazione di eventi positivi o ambigui. L'ippocampo, nel lobo temporale mediale, è fondamentale per molte forme di memoria episodica e per la rappresentazione di relazioni spaziali e contestuali. Non contiene tutte le memorie in modo permanente, né esaurisce l'insieme dei sistemi di memoria.
I nuclei della base comprendono più strutture, fra cui striato e pallido, che partecipano a circuiti cortico-sottocorticali coinvolti nella selezione delle azioni, nelle abitudini e nell'apprendimento basato sulle conseguenze. Le vie dopaminergiche che li modulano sono particolarmente rilevanti per la comprensione di alcuni sintomi motori della malattia di Parkinson, ma non si deve dedurre che ogni azione abituale sia determinata da una sola struttura. Le reti implicate nel comportamento operano attraverso segnali simultanei di diverse regioni e attraverso il corpo che esegue e corregge i movimenti.
3.7 Corteccia cerebrale, lobi e sistemi distribuiti
Superficie, pieghe e organizzazione
La corteccia cerebrale è uno strato di tessuto nervoso che riveste gran parte degli emisferi e comprende numerose popolazioni cellulari organizzate in regioni e, nella neocorteccia tipica, in strati. Le pieghe della superficie formano giri e solchi, che consentono una maggiore estensione corticale entro i vincoli del cranio. Il volume complessivo del cervello e il grado di ripiegamento non sono misure dirette dell'intelligenza di un singolo individuo; dipendono da molti aspetti anatomici e non bastano a riassumere la qualità di una rete funzionale.
Si distinguono convenzionalmente quattro grandi lobi visibili sulla superficie laterale di ciascun emisfero: frontale, parietale, temporale e occipitale. La distinzione fornisce una prima mappa, non il catalogo esclusivo di tutte le funzioni. L'insula, per esempio, è una porzione corticale profonda, coperta da altre regioni, che contribuisce a diversi processi, fra cui percezioni corporee e aspetti dell'elaborazione affettiva. La corteccia cingolata comprende regioni mediali coinvolte in differenti circuiti cognitivi, motori e affettivi.
Lobo frontale e pianificazione del comportamento
Il lobo frontale comprende aree motorie che contribuiscono al controllo dei movimenti volontari e regioni prefrontali implicate in pianificazione, memoria di lavoro, valutazione e controllo flessibile delle risposte. Le funzioni esecutive, come inibire una risposta impulsiva o aggiornare un obiettivo, non risiedono in un singolo punto: richiedono spesso scambi fra regioni prefrontali, parietali e sottocorticali. Il caso storico di Phineas Gage ha reso evidente l'importanza dei lobi frontali per il comportamento sociale, ma le narrazioni popolari spesso esagerano la certezza delle ricostruzioni e la possibilità di dedurre da un solo paziente un modello universale della personalità.
Un compito apparentemente semplice come preparare la valigia per un viaggio richiede mantenere un obiettivo, rappresentare passaggi intermedi, resistere a distrazioni, recuperare informazioni e adattarsi a imprevisti. Diversi circuiti possono sostenere queste attività. Questo spiega perché una difficoltà esecutiva possa emergere in condizioni molto diverse: non equivale automaticamente a un danno «al lobo frontale», né una singola misura di attenzione dimostra l'integrità di tutte le funzioni esecutive.
Lobo parietale, temporale e occipitale
Il lobo parietale comprende regioni somatosensoriali e reti che partecipano a rappresentare spazio, corpo e relazioni fra stimoli. Lesioni specifiche, spesso dell'emisfero destro, possono contribuire alla negligenza spaziale unilaterale, una difficoltà a orientare o rispondere a informazioni provenienti da una parte dello spazio, non spiegabile semplicemente come cecità. Il lobo temporale comprende sistemi importanti per elaborazione uditiva, riconoscimento di alcuni stimoli complessi e memoria; contiene anche strutture del lobo temporale mediale fondamentali per l'apprendimento di nuovi episodi.
Il lobo occipitale comprende gran parte della corteccia visiva primaria e numerose aree visive coinvolte nell'analisi di caratteristiche degli stimoli. Il cervello non riceve dagli occhi un'immagine già interpretata con oggetti etichettati: elabora contrasto, bordi, movimento e altre informazioni tramite vie interconnesse. È utile parlare di elaborazione visiva «ventrale» e «dorsale», ma le due vie non sono compartimenti isolati e interagiscono con altre regioni, inclusi i sistemi motori e attentivi.
Lateralizzazione senza miti sugli emisferi
Molte funzioni presentano una lateralizzazione, cioè una distribuzione asimmetrica fra emisferi. Per la maggior parte delle persone i sistemi del linguaggio sono maggiormente lateralizzati a sinistra, sebbene le differenze individuali siano reali e nessun emisfero lavori da solo. Il corpo calloso e altre commissure permettono scambi fra i due lati. Gli studi su persone con interventi di disconnessione interemisferica hanno offerto importanti informazioni sulla specializzazione, ma non giustificano la distinzione commerciale fra individui «creativi di emisfero destro» e «logici di emisfero sinistro».
La ricerca sulle lesioni mostra anche il rischio di equiparare una struttura alla totalità di una funzione. Un'afasia successiva a danni in certe regioni perisilviane non significa che tutto il linguaggio venga «conservato» lì; molte abilità linguistiche richiedono connessioni distribuite. Inoltre gli esiti di una lesione dipendono da plasticità, perfusione, dimensioni e storia individuale. Per comprendere un comportamento è spesso più utile chiedersi quale rete e quale trasformazione dell'informazione siano necessarie, anziché cercare un unico «indirizzo» cerebrale.
Reti a riposo e attività spontanea
Le reti cerebrali non cessano di funzionare quando una persona non esegue un compito specifico. Registrazioni e studi di neuroimmagine mostrano fluttuazioni spontanee e pattern di coordinazione che possono cambiare fra compiti e stati di riposo. Alcune regioni mediali e laterali mostrano correlazioni spesso discusse sotto il nome di default mode network, o rete di modalità predefinita. Questo termine indica un pattern di relazione statistica e funzionale, non una regione unica che «produce l'io» né un processo esclusivamente attivo quando non accade nulla.
Le fluttuazioni spontanee possono essere analizzate per costruire ipotesi sulla struttura funzionale delle reti, ma introducono difficoltà di interpretazione: respirazione, movimento, livelli di vigilanza e procedure di pulizia dei dati possono influire sulle correlazioni osservate. La rete di default può essere discussa in relazione a memoria autobiografica e pensiero autoreferenziale in molti studi, senza concludere che un singolo indice di connettività identifichi in modo clinico la qualità del senso di sé di una persona. Analogamente, le reti fronto-parietali sono frequentemente associate a compiti di controllo cognitivo, ma il termine «rete esecutiva» è una categoria funzionale ampia e dipendente dalle definizioni.
Corteccia motoria e organizzazione somatotopica
Nella corteccia motoria primaria esistono mappe approssimative dei territori corporei, spesso rappresentate con la figura dell'omuncolo motorio, nella quale le parti del corpo sono deformate per rendere intuitiva la diversa rappresentazione corticale. Questa immagine non è la sagoma di una persona nel cervello né un atlante con confini rigidi: le rappresentazioni sono sovrapposte, dinamiche e sensibili al compito. Anche nella corteccia somatosensoriale primaria si osserva una certa organizzazione topografica, ma le mappe non esauriscono la rappresentazione neurale delle sensazioni corporee.
Il movimento volontario coinvolge, oltre alla corteccia motoria primaria, aree premotorie, gangli della base, cervelletto, tronco, midollo e feedback sensoriale. Preparare un movimento, eseguirlo e correggerlo sono operazioni coordinate. La capacità di raggiungere una tazza senza guardare continuamente la mano dipende da rappresentazioni interne e da informazioni propriocettive, cioè segnali sulla posizione delle articolazioni e dei muscoli. Quando un errore avviene, il sistema deve distinguere se sia cambiato l'oggetto, il corpo o la previsione del movimento. Questo rende la fisiologia motoria un ottimo esempio di inferenza incorporata nel corpo, non un semplice trasferimento di ordini dall'alto verso il basso.
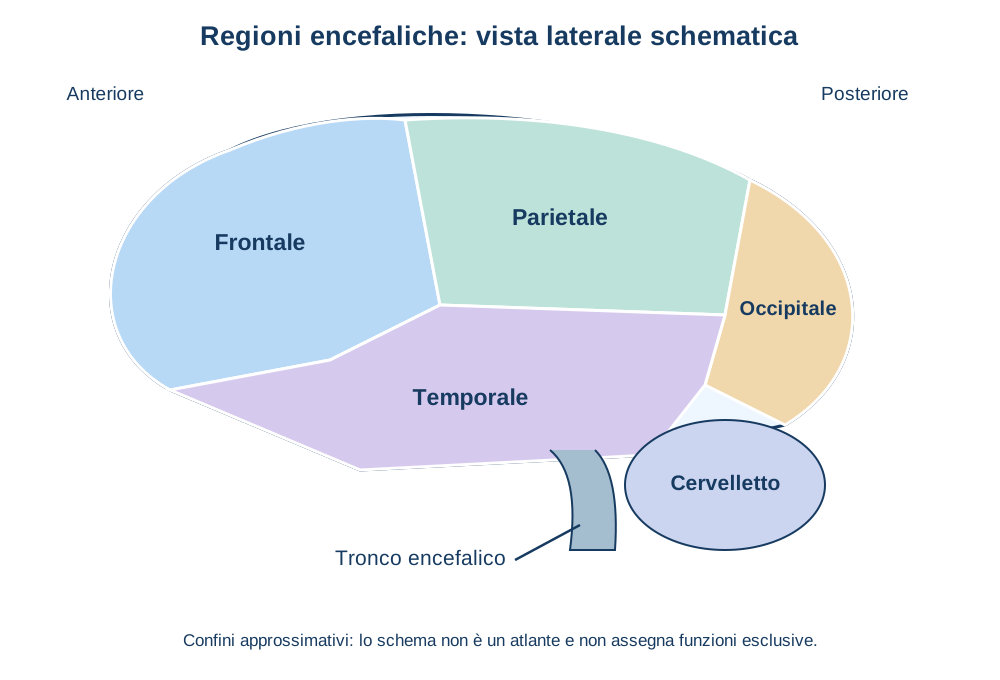
La figura 3.5 rappresenta mappa semplificata di regioni encefaliche in forma originale, con le approssimazioni dichiarate in didascalia.
3.8 Sistemi autonomo ed endocrino: il cervello nel corpo
Simpatico, parasimpatico ed enterico
Il sistema nervoso autonomo comprende componenti simpatiche, parasimpatiche ed enteriche. In termini generali la componente simpatica può sostenere la mobilitazione dell'organismo davanti a una sfida, aumentando la frequenza cardiaca e modificando la distribuzione delle risorse; quella parasimpatica contribuisce a regolare numerosi processi viscerali, incluso il controllo della frequenza cardiaca e della digestione. Il sistema enterico contiene circuiti locali nel tratto gastrointestinale. Queste componenti sono attive in modo coordinato, non rappresentano due tasti mutuamente esclusivi «allarme» e «riposo» che si alternano rigidamente.
Il cuore offre un esempio intuitivo. L'attività parasimpatica vagale può rallentare rapidamente il ritmo cardiaco; l'attività simpatica può aumentarlo e sostenere la contrazione. Ma l'effetto osservato in una situazione dipende anche da postura, respirazione, attività fisica, ormoni e stato del sistema cardiovascolare. Una variazione della frequenza cardiaca durante un esperimento psicologico indica un cambiamento fisiologico, non consente da sola di leggere un'emozione specifica come se fosse una parola sullo schermo.
Segnali endocrini e ormoni
Il sistema endocrino utilizza messaggeri chimici, chiamati ormoni, rilasciati nel sangue da cellule o ghiandole e capaci di agire su tessuti che possiedono recettori appropriati. Rispetto a molte sinapsi, la comunicazione endocrina può coinvolgere distanze maggiori e scale temporali diverse, ma la distinzione non è assoluta. Alcune molecole svolgono più ruoli: un segnale può essere neurotrasmettitore in una sinapsi, neuromodulatore in un circuito o ormone in un contesto diverso.
L'asse ipotalamo-ipofisi-surrene, spesso abbreviato HPA dall'inglese, è coinvolto nella risposta allo stress. In una descrizione semplificata, segnali ipotalamici favoriscono il rilascio di ACTH dall'ipofisi anteriore, che stimola nella corteccia surrenale la produzione di cortisolo. Il cortisolo partecipa alla regolazione metabolica e all'adattamento alle richieste, e il sistema comprende meccanismi di feedback negativo. Non è corretto descrivere il cortisolo soltanto come «ormone dannoso»: è fisiologicamente necessario e i suoi effetti dipendono da dose, durata, tessuti e contesto.
La midollare del surrene può rilasciare catecolamine, come adrenalina, a seguito di attivazione simpatica. Quest'ultima risposta non va confusa con la più articolata regolazione dell'asse HPA. In generale le due vie possono coordinarsi, ma hanno componenti, tempi ed effetti differenti. Una corretta spiegazione dello stress distingue quindi la trasmissione nervosa rapida dai segnali endocrini sistemici e dagli adattamenti di lungo periodo.
Interocezione: percepire ciò che accade dentro
L'interocezione riguarda il rilevamento e l'elaborazione di segnali provenienti dall'interno del corpo, come informazioni cardiovascolari, respiratorie e gastrointestinali. Il cervello integra tali segnali con aspettative e situazioni esterne per contribuire alla regolazione del comportamento e dell'esperienza soggettiva. Una persona che avverte il battito accelerato durante un esame può interpretarlo come paura, eccitazione o attivazione utile secondo il contesto e la propria storia. Ciò non significa che le emozioni siano invenzioni disconnesse dal corpo: significa che le sensazioni corporee sono una parte di processi interpretativi e regolativi più ampi.
La relazione cervello-corpo è bidirezionale. Il sistema nervoso influenza gli organi, ma riceve continuamente informazioni su risorse energetiche, infiammazione, postura e ambiente interno. Per questo un approccio rigoroso alla psicologia evita di separare artificialmente un «cervello pensante» da un corpo che farebbe da semplice contenitore. Alla stessa maniera evita di attribuire ogni disagio psicologico a un singolo ormone, test o indice fisiologico.

La figura 3.6 rappresenta regolazione dell’asse ipotalamo-ipofisi-surrene in forma originale, con le approssimazioni dichiarate in didascalia.
3.9 Geni, ereditarietà ed epigenetica
Dalla sequenza di DNA ai processi biologici
Il DNA, o acido desossiribonucleico, è una molecola che contiene sequenze informative utilizzate dalle cellule per regolare la produzione di RNA e, attraverso diversi processi, di proteine. Un gene può essere descritto in termini operativi come una regione del DNA coinvolta nella produzione di prodotti funzionali, insieme a elementi regolativi che influenzano quando e dove l'informazione viene utilizzata. Non tutti i caratteri umani corrispondono a un rapporto semplice fra un gene e un comportamento. Anche quando una variante genetica presenta un effetto biologico diretto, il risultato finale può dipendere da migliaia di interazioni cellulari e ambientali.
Un allele è una delle possibili versioni di una sequenza genetica in una posizione. Nelle ricerche sulla psicologia umana si incontrano spesso caratteri poligenici, ossia influenzati da molte varianti, ciascuna delle quali può contribuire in media con una piccola quota a differenze statistiche. Questo non implica che le varianti agiscano in modo perfettamente indipendente né che il contributo genetico sia fissato una volta per tutte. La espressione genica indica quali trascritti e prodotti vengono generati, in quali quantità e in quali condizioni: cellule con lo stesso DNA possono presentare caratteristiche differenti perché esprimono gruppi diversi di geni.
Che cosa misura l'ereditabilità
L'ereditabilità è una misura statistica della quota di variabilità di un carattere, in una popolazione e in condizioni definite, associabile alle differenze genetiche secondo un modello. Non rappresenta la percentuale di «genetico» contenuta nel carattere di una singola persona. Se, in una popolazione relativamente omogenea per ambiente, un tratto mostra ereditabilità elevata, ciò non significa che il tratto non possa modificarsi mediante istruzione, cure o cambiamenti sociali. Un esempio classico riguarda l'altezza: le differenze genetiche contribuiscono alle differenze osservate, ma nutrizione e salute possono modificare in modo consistente la distribuzione delle stature fra generazioni.
Gli studi sui gemelli confrontano, con assunzioni importanti, somiglianze di gemelli monozigoti e dizigoti; gli studi sulle adozioni possono contribuire a distinguere alcuni aspetti delle influenze familiari. Nessun disegno è privo di limiti. I gemelli monozigoti potrebbero condividere ambienti in modo diverso dai dizigoti; la selezione delle famiglie adottive può non essere casuale; il contesto socioculturale influenza le opportunità disponibili. Anche l'interpretazione di una predisposizione genetica richiede attenzione a correlazioni gene-ambiente, nelle quali caratteristiche ereditarie e ambienti frequentati non risultano indipendenti.
I moderni studi di associazione sull'intero genoma, o GWAS, cercano associazioni statistiche fra numerose varianti genetiche e un fenotipo, cioè un carattere misurabile. Le grandi dimensioni del campione permettono di identificare effetti medi piccoli, ma un'associazione non identifica automaticamente il meccanismo biologico né fornisce una previsione individuale accurata. I punteggi poligenici aggregano molte associazioni e dipendono dalla popolazione di riferimento, dalla definizione del tratto e dalla qualità dei dati. Trasformarli in diagnosi psicologiche o gerarchie di valore umano sarebbe una conclusione scientificamente e socialmente ingiustificata.
Epigenetica: regolazione, non riscrittura magica dei geni
Per epigenetica si intende lo studio di meccanismi che regolano l'attività dei geni senza cambiare necessariamente la sequenza di basi del DNA, come alcune modificazioni della cromatina e la metilazione di specifiche regioni. La cromatina comprende DNA e proteine associate, fra cui gli istoni, e la sua organizzazione contribuisce a rendere più o meno accessibili determinate sequenze. Alcuni cambiamenti epigenetici possono essere relativamente stabili durante la divisione cellulare; altri sono dinamici e rispondono alle condizioni dell'organismo. L'espressione «memoria epigenetica» va intesa in un senso biologico preciso, non confusa con la memoria autobiografica di una persona.
L'esperienza può influire sulla fisiologia e su sistemi di regolazione genica, ma da questo non deriva che un trauma psicologico produca sempre una specifica modifica epigenetica trasmissibile ai discendenti. Gran parte delle affermazioni forti sulla trasmissione epigenetica transgenerazionale nell'essere umano richiede controlli difficili e resta oggetto di dibattito. Studi sugli animali aiutano a esplorare meccanismi possibili, ma il passaggio dai roditori alle vicende umane non è automatico. Nel manuale si distingueranno quindi risultati sperimentali circoscritti, ipotesi meccanicistiche e racconti divulgativi non adeguatamente dimostrati.
La falsa opposizione fra natura e cultura
Una persona può possedere predisposizioni biologiche che rendono più probabile un certo stile di risposta in alcuni ambienti, ma le esperienze modulano apprendimento, competenze e opportunità. L'interazione gene-ambiente descrive casi nei quali gli effetti di una variante differiscono in funzione di condizioni ambientali; la correlazione gene-ambiente descrive situazioni nelle quali caratteristiche genetiche e ambienti risultano statisticamente associati. Sono concetti distinti e, per identificarli empiricamente, servono disegni e ipotesi differenti.
Supponiamo che un bambino mostri un interesse precoce per il ritmo musicale. Le caratteristiche del sistema uditivo e motorio possono contribuire all'esperienza, ma opportunità di pratica, incoraggiamento, risorse economiche e contesto culturale influenzano lo sviluppo dell'abilità. Non possiamo dividere il risultato finale in percentuali individuali assolute «natura» e «cultura» semplicemente osservando il livello raggiunto. Le domande utili riguardano quali condizioni favoriscano una capacità, attraverso quali meccanismi e con quali differenze fra persone.
Epigenetica e causalità dell'esperienza
Per valutare un'affermazione secondo cui un evento sociale avrebbe modificato l'epigenoma, occorre chiedere in quale tessuto sia stata misurata la modificazione, su quali cellule, in quale momento e rispetto a quali condizioni di confronto. Un campione di sangue può permettere misure importanti, ma non equivale automaticamente a osservare la medesima modificazione in specifiche popolazioni neuronali. Differenze nella composizione cellulare del campione possono generare differenze apparenti anche quando i meccanismi regolatori delle singole cellule non cambiano nel modo ipotizzato.
Le ricerche più convincenti combinano misure biologiche ripetute, informazioni ambientali accuratamente definite e analisi delle cause alternative. In studi osservazionali può essere difficile distinguere gli effetti di un ambiente dai cambiamenti che l'organismo già presentava prima dell'esposizione. La possibilità di manipolare sperimentalmente certe condizioni in organismi modello aiuta a indagare causalità meccanicistiche, ma crea un ulteriore problema di trasferibilità all'essere umano. Per questo il linguaggio scientifico dovrebbe dire «associato a differenze di metilazione in un campione definito» quando è ciò che il dato sostiene, e non «l'esperienza ha riscritto i geni».
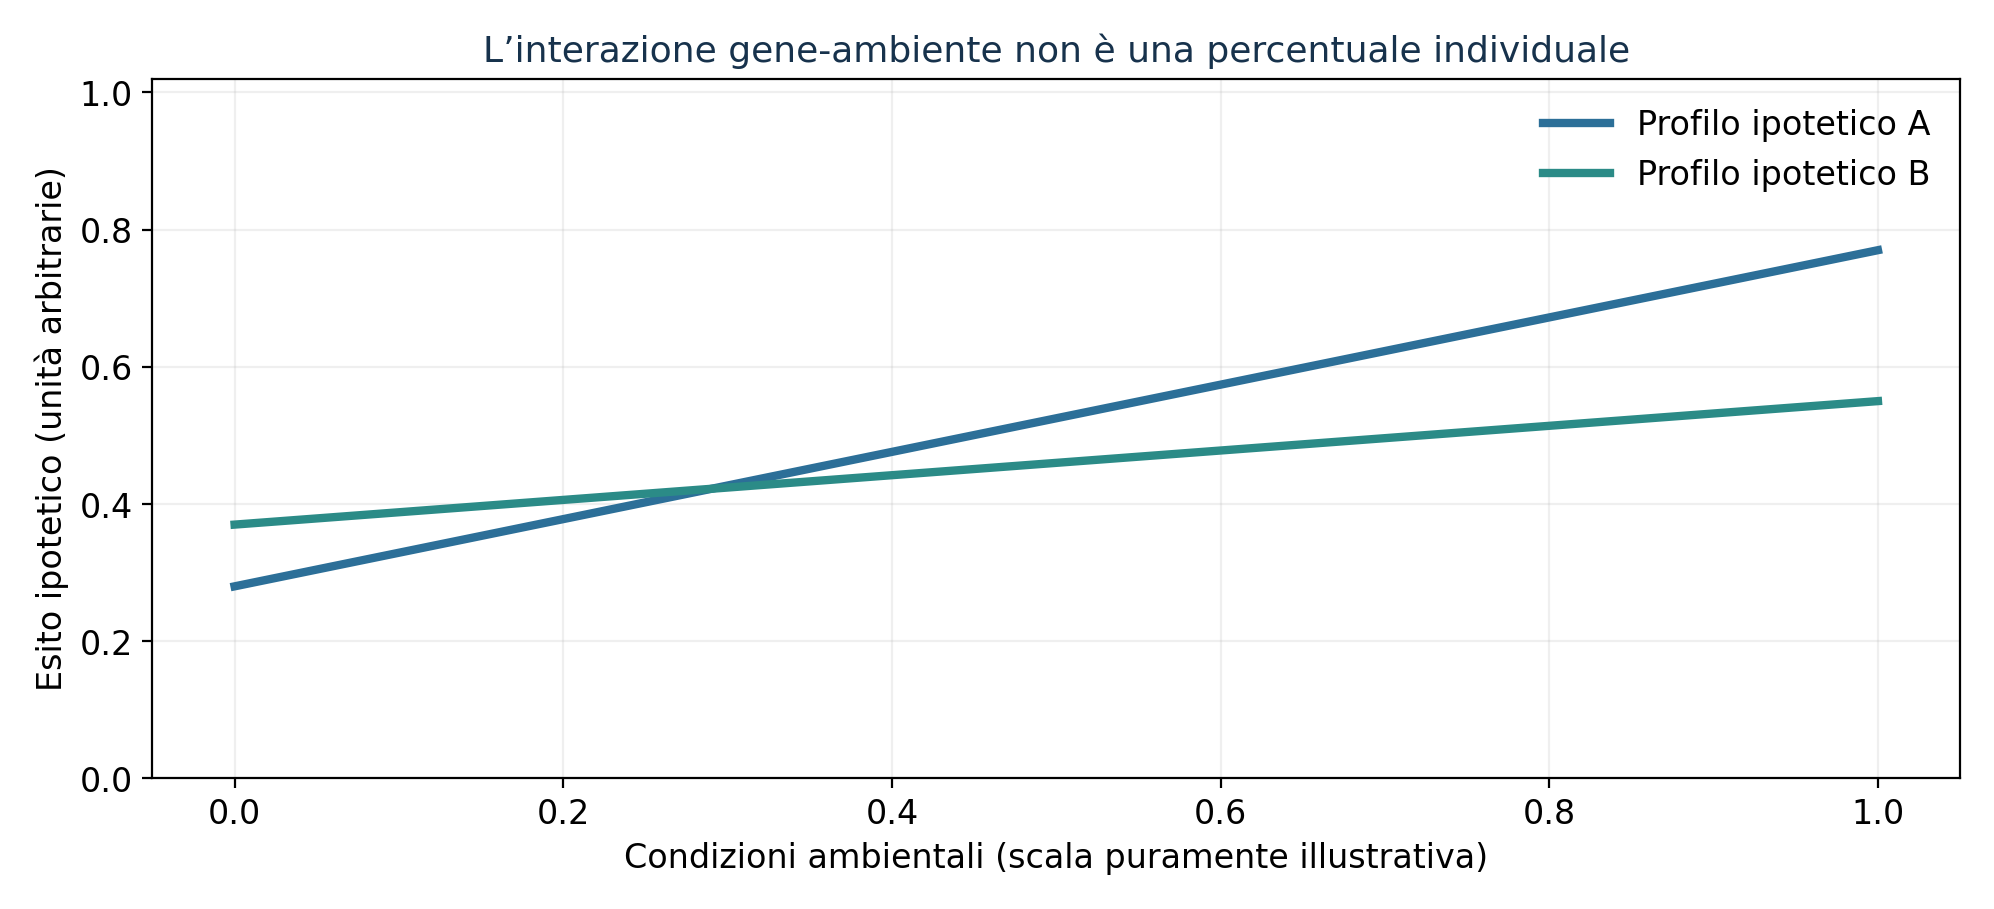
La figura 3.7 rappresenta un’interazione gene-ambiente ipotetica in forma originale, con le approssimazioni dichiarate in didascalia.
Tabella 3.4 — Metodi della genetica comportamentale: che cosa consentono
Approccio | Domanda possibile | Limite da ricordare |
|---|---|---|
Gemelli | Confrontare somiglianze in diverse parentele | Ambienti condivisi e altre assunzioni |
Adozioni | Confrontare relazioni genetiche e familiari | Selezione delle famiglie e condizioni sociali |
GWAS | Localizzare associazioni statistiche diffuse | Meccanismo biologico non garantito |
Punteggio poligenico | Aggregare effetti genetici stimati | Generalizzazione fra popolazioni variabile |
Epigenomica | Studiare regolazioni della cromatina | Transgenerazionalità non automatica |
La tabella sintetizza distinzioni che vanno lette insieme alle spiegazioni del testo.
3.10 Plasticità, sviluppo, esercizio e apprendimento
Che cosa significa che il cervello cambia
La plasticità cerebrale è la capacità del sistema nervoso di modificare proprietà strutturali e funzionali in relazione a sviluppo, attività, esperienza, ambiente e danno. Non significa che qualunque neurone possa assumere qualunque funzione o che ogni cambiamento osservato sia necessariamente positivo. La plasticità comprende fenomeni con scale temporali differenti: modifiche temporanee dell'efficacia sinaptica, rimodellamento di connessioni, variazioni dell'eccitabilità, cambiamenti legati alla mielinizzazione e, in alcune regioni e condizioni, processi che coinvolgono la generazione di nuove cellule. Le interpretazioni dipendono dai metodi usati e dalla specie studiata.
La potenziazione a lungo termine (LTP) è un aumento persistente dell'efficacia di trasmissione in determinate sinapsi in seguito a particolari protocolli di attività. La depressione a lungo termine (LTD), in un significato specifico della neurofisiologia, indica una riduzione durevole dell'efficacia sinaptica; non va confusa con il disturbo depressivo. Questi fenomeni costituiscono modelli sperimentali importanti per studiare meccanismi cellulari della plasticità, ma sarebbe scorretto sostenere che ogni ricordo umano corrisponde semplicemente a un singolo evento di LTP. I ricordi si distribuiscono attraverso sistemi e processi molecolari, sinaptici e di rete complessi.
Quando l'esperienza modifica le sinapsi
Le ricerche condotte sul mollusco marino Aplysia hanno permesso di collegare forme relativamente semplici di apprendimento ai cambiamenti dell'efficacia sinaptica. In compiti basati su un riflesso difensivo, stimolazioni ripetute innocue possono produrre abituazione, ossia una diminuzione della risposta; stimoli intensi possono determinare sensibilizzazione, cioè una risposta aumentata a stimoli successivi. Il programma di ricerca di Eric Kandel e collaboratori ha mostrato che tali cambiamenti comportamentali possono essere accompagnati da alterazioni misurabili della trasmissione e, per alcuni effetti duraturi, da meccanismi di espressione genica e sintesi proteica.
La lezione teorica è importante: apprendere non significa immagazzinare un contenuto in un compartimento staccato dal corpo, ma modificare il funzionamento di un sistema biologico attraverso l'esperienza. Tuttavia il sistema nervoso di Aplysia è molto diverso da quello umano. Il valore del modello consiste nell'identificare principi e meccanismi verificabili, non nel sostenere che tutta la complessità della memoria autobiografica possa essere dedotta senza ulteriori prove dalle risposte di un animale invertebrato.
Un'altra idea fondamentale è che le sinapsi possano modificarsi in funzione della relazione temporale fra le attività presinaptiche e postsinaptiche. La plasticità dipendente dal tempo degli spike descrive protocolli sperimentali nei quali l'ordine e l'intervallo temporale dei potenziali d'azione influenzano il segno e la quantità del cambiamento sinaptico. Anche qui sono essenziali i limiti di generalizzazione: in sistemi diversi esistono regole differenti, modulate da neuromodulatori e stati cellulari. Non esiste un'unica legge universale dell'apprendimento biologico valida per qualunque rete.
Il cervello adulto e la pratica
Il cervello adulto conserva capacità di cambiamento, sebbene le sue forme e possibilità differiscano da quelle dello sviluppo precoce. Uno studio noto sull'esperienza di navigazione dei tassisti londinesi ha rilevato differenze in parti dell'ippocampo rispetto a gruppi di confronto e un'associazione con gli anni di esperienza. Il quesito era se l'apprendimento intenso di una città complessa si accompagnasse a modificazioni anatomiche misurabili. Le immagini strutturali consentivano di confrontare volumi regionali, non di «vedere» direttamente i ricordi. Il disegno originario, prevalentemente osservazionale, non eliminava tutte le possibili differenze preesistenti; analisi e studi successivi hanno cercato di controllare meglio le spiegazioni alternative.
Un altro filone ha studiato l'allenamento nella giocoleria, confrontando misure cerebrali prima e dopo periodi di pratica. In alcuni lavori sono state osservate modifiche strutturali macroscopiche associate all'allenamento e alla successiva interruzione. Una misura di volume o densità stimata attraverso MRI non identifica da sola quali elementi microscopici siano cambiati: dendriti, cellule gliali, vascolarizzazione e molte altre caratteristiche possono contribuire al segnale. È quindi più rigoroso dire che l'allenamento si associa a variazioni nelle misure anatomiche, invece di dichiarare senza misure dirette che «sono cresciuti nuovi neuroni».
Esercizio fisico, sonno e condizioni di recupero
L'attività fisica regolare è associata a benefici per diversi aspetti della salute e, in determinate condizioni, a risultati migliori in alcune misure cognitive. La ricerca esamina fattori cardiovascolari, sonno, umore, infiammazione e molecole implicate nella plasticità, senza che sia corretto ridurre tutti gli effetti a una singola sostanza «che crea neuroni». La qualità delle prove varia fra età, interventi, misure e durata dei follow-up. Gli effetti medi di gruppo non implicano che un numero esatto di minuti di esercizio provochi lo stesso guadagno cognitivo in ogni individuo.
Il sonno partecipa alla regolazione dell'attività sinaptica e a diversi processi di consolidamento della memoria. Gli studi sperimentali suggeriscono relazioni fra fasi del sonno, riattivazione di rappresentazioni e prestazioni successive, ma le spiegazioni sono articolate e non consentono di sostenere che il cervello «archivi automaticamente» tutti gli eventi della giornata in modo fedele. L'apprendimento dipende anche da recupero attivo, distribuzione della pratica, feedback e significato dei materiali. La plasticità fornisce il supporto biologico del cambiamento; le strategie didattiche determinano quali esperienze favoriscano davvero le competenze desiderate.
Neuroplasticità non significa guarigione illimitata
Dopo alcune lesioni, reti residue possono riorganizzarsi e sostenere recuperi funzionali attraverso riabilitazione, apprendimento e compensazione. Ma esistono limiti dovuti a tipo di danno, estensione, età, condizioni generali e opportunità terapeutiche. La «neuroplasticità» viene spesso utilizzata come slogan per promettere risultati terapeutici non dimostrati. La valutazione corretta richiede studi clinici controllati, misure di miglioramento funzionale e confronto con l'evoluzione naturale delle condizioni. La speranza di cambiamento è compatibile con una descrizione realistica dei limiti biologici e delle differenze individuali.
Le reti cerebrali si sviluppano nel tempo
Durante lo sviluppo la produzione e la migrazione neuronale, la crescita degli assoni, la formazione e l'eliminazione selettiva di connessioni e la mielinizzazione si svolgono secondo traiettorie diverse fra regioni. Un processo importante è il pruning sinaptico, o potatura sinaptica, termine che indica il rimodellamento e la riduzione selettiva di alcune connessioni, entro un sistema in cui altre connessioni possono stabilizzarsi o rafforzarsi. Non significa che il cervello «perda conoscenza» ogni volta che diminuisce il numero di alcune sinapsi: la qualità e l'organizzazione delle reti sono più importanti del semplice conteggio totale.
Esistono periodi sensibili, fasi dello sviluppo nelle quali determinate esperienze possono avere effetti particolarmente pronunciati. Un periodo sensibile non è necessariamente una finestra che si chiude per sempre; la possibilità di apprendimento successivo può rimanere, sebbene con caratteristiche diverse. La plasticità visiva precoce è un modello importante per comprendere come una stimolazione sensoriale appropriata contribuisca alla formazione dei circuiti. Anche qui è necessario distinguere le dimostrazioni sperimentali in animali dalle inferenze su istruzione e sviluppo sociale umano. Non è scientificamente difendibile ricavare da un singolo esperimento sulla corteccia visiva una prescrizione universale su come ogni bambino debba studiare o crescere.
Ricerche anatomiche longitudinali e causalità
Uno studio longitudinale osserva gli stessi individui in momenti diversi, a differenza di un confronto esclusivamente trasversale fra persone diverse. Quando si misurano variazioni nella MRI prima e dopo un allenamento si riduce il peso di alcune differenze individuali stabili, ma non si elimina ogni spiegazione alternativa: l'abitudine agli strumenti, l'effetto di selezione, le variazioni fisiologiche e gli eventi concomitanti possono influenzare il risultato. Per attribuire una modifica all'intervento occorre un gruppo di controllo adeguato e, quando possibile, un'assegnazione casuale con misure predefinite.
Anche i termini utilizzati nei referti e negli articoli vanno interpretati con precisione. La densità di sostanza grigia stimata mediante alcune procedure di MRI non è un conteggio istologico di neuroni, e l'aumento di segnale in una regione non prova che siano nate nuove cellule. La plasticità strutturale indica un cambiamento nelle misure strutturali disponibili, che va collegato a meccanismi cellulari soltanto con ulteriori ricerche. Questa cautela è essenziale per evitare che dati scientificamente interessanti diventino slogan sulla crescita illimitata del cervello.
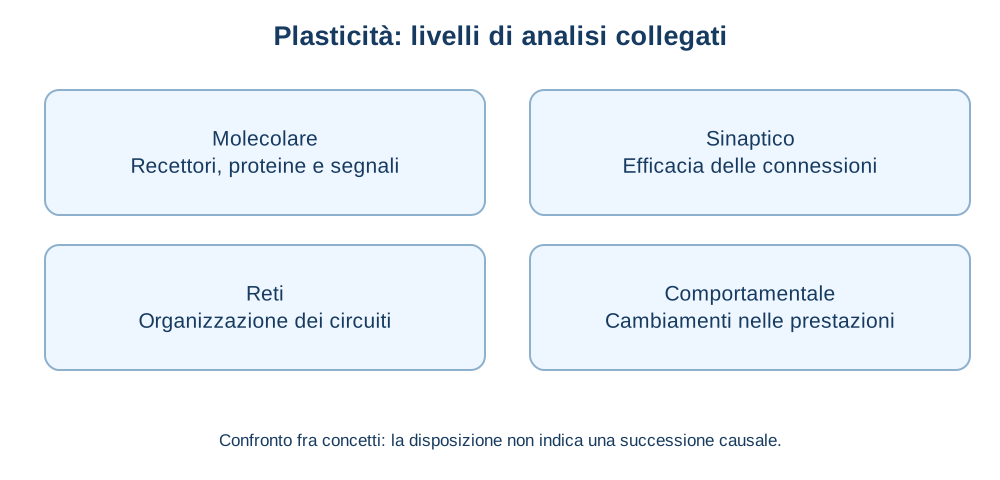
La figura 3.8 rappresenta livelli delle trasformazioni associate all’esperienza in forma originale, con le approssimazioni dichiarate in didascalia.
3.11 Lesioni, lateralizzazione e connettività
Studi delle lesioni: una finestra causale, non un atlante semplice
Gli studi di pazienti con lesioni cerebrali hanno contribuito a chiarire relazioni fra strutture e abilità. Quando una persona perde selettivamente una funzione dopo un danno localizzato, il dato suggerisce che la regione o la connessione interessata contribuisca, direttamente o indirettamente, alla funzione. Tuttavia le lesioni naturali raramente rispettano i confini teorici delle aree: possono coinvolgere fibre di passaggio, causare modificazioni della perfusione e produrre effetti a distanza. Le alterazioni comportamentali possono dipendere anche da fatica, farmaci e reazioni psicologiche alla malattia.
Il paziente noto come H.M., sottoposto nel 1953 a una resezione bilaterale di regioni temporali mediali per trattare una grave epilessia, sviluppò una marcata difficoltà nel formare nuovi ricordi dichiarativi duraturi. Al contempo conservava alcune forme di apprendimento motorio, mostrando una dissociazione fra sistemi di memoria. Il caso ha trasformato la teoria secondo cui la memoria sarebbe una facoltà unitaria. È comunque importante riconoscere che l'intervento coinvolse più strutture e che la conoscenza clinica successiva ha permesso descrizioni anatomiche più accurate rispetto ai primi resoconti: non sarebbe corretto attribuire ogni aspetto del profilo a una sola sottoregione.
Un caso singolo può suggerire ipotesi importanti, ma non basta automaticamente a stabilire la distribuzione della funzione nella popolazione. Gli studi di gruppo, la mappatura lesione-sintomo e il confronto con misure funzionali consentono controlli aggiuntivi. La dissociazione, cioè un danno che compromette la funzione A lasciando relativamente preservata B, è più informativa se accompagnata da misure appropriate della difficoltà dei compiti. Una doppia dissociazione, nella quale due pazienti o gruppi presentano profili opposti, può sostenere l'esistenza di componenti funzionali distinguibili, pur senza dimostrare necessariamente moduli cerebrali completamente indipendenti.
Specializzazione e reti distribuite
Nella storia della neuroscienza cognitiva le osservazioni di Paul Broca e Carl Wernicke sono state importanti per collegare aspetti del linguaggio a determinate regioni. Oggi sappiamo che produzione e comprensione linguistica implicano reti corticali e sottocorticali interconnesse. L'analisi delle fibre di sostanza bianca mostra che alterare un collegamento può compromettere una funzione anche senza distruggere completamente i nodi principali. Di conseguenza una mappa funzionale del cervello non dovrebbe rappresentare ogni abilità come un'area isolata colorata.
La connettività anatomica riguarda i percorsi fisici che collegano regioni; la connettività funzionale indica relazioni statistiche fra serie di attività misurate in regioni diverse; la connettività efficace cerca di rappresentare influenze direzionali all'interno di un modello causale esplicito. Sono nozioni differenti. Due regioni possono mostrare segnali correlati perché ricevono un input comune e non perché comunichino direttamente l'una con l'altra. Inoltre un percorso visibile in trattografia, tecnica basata sulla diffusione dell'acqua nelle fibre, non costituisce una fotografia diretta di singoli assoni o della forza fisiologica di una connessione.
Il connettoma e il problema delle scale
Il termine connettoma indica una descrizione delle connessioni del sistema nervoso, ma il dettaglio dipende dalla scala. Nei sistemi microscopici la ricostruzione può mirare a singole sinapsi; negli esseri umani vivi la mappatura non invasiva descrive prevalentemente sistemi macroscopici e stime indirette. Il progetto Human Connectome ha contribuito a sviluppare e condividere dati di elevata qualità sulle connessioni strutturali e funzionali. Anche mappe molto dettagliate restano incomplete rispetto alla fisiologia dinamica di ogni sinapsi e all'influenza di neurotrasmettitori, cellule gliali e stato dell'organismo.
Un paragone utile è quello di una rete ferroviaria. Una mappa dei binari mostra quali stazioni siano collegate, ma non dice necessariamente quanti treni passino, quali siano occupati, che cosa trasportino e per quale motivo una persona scelga un percorso. Analogamente una mappa anatomica stabilisce vincoli importanti ma non equivale a una descrizione dell'attività effettiva, e una correlazione fra segnali non equivale a un collegamento diretto. È proprio l'integrazione di anatomia, fisiologia, perturbazioni sperimentali e misure comportamentali che rende più solide le spiegazioni.
3.12 Come si studia il cervello: elettrofisiologia, neuroimmagini e stimolazione
La domanda viene prima dello strumento
Prima di scegliere una tecnica occorre precisare che cosa si intende misurare. Se il problema è conoscere la latenza di una risposta cerebrale a un suono, sono preziose misure con risoluzione temporale molto elevata. Se l'obiettivo è verificare la presenza di una lesione o la forma di una struttura, serve una buona descrizione anatomica. Se si vuole studiare l'eventuale contributo causale di una regione a un comportamento, una manipolazione perturbativa può aggiungere informazioni non ricavabili dalla sola correlazione. I metodi hanno punti di forza diversi e le conclusioni dipendono dalla qualità del disegno sperimentale, non dal fascino delle immagini.
EEG e potenziali evento-correlati
L'elettroencefalografia (EEG) registra differenze di potenziale elettrico attraverso elettrodi posti sul cuoio capelluto. I segnali misurati riflettono soprattutto l'attività aggregata e sincronizzata di numerose popolazioni neuronali, influenzata dalla geometria dei tessuti. L'EEG offre in genere ottima risoluzione temporale, nell'ordine dei millisecondi, ma la localizzazione delle sorgenti intracraniche è un problema inverso complesso e dipendente da modelli anatomici. Non è corretto descriverlo come un dispositivo che «vede» un neurone specifico.
I potenziali evento-correlati (ERP) sono componenti dell'attività elettrica ottenute analizzando segnali EEG allineati a eventi, spesso mediante medie e altri metodi. Una variazione di ampiezza o latenza può essere collegata a processi attentivi, sensoriali o cognitivi in un compito definito. Ma il nome di una componente non è la sua spiegazione: osservare un certo picco non prova da solo che il partecipante abbia provato una determinata emozione. Artefatti da movimenti oculari, muscoli, rumore elettrico e scelte analitiche richiedono controlli sistematici.
MEG e registrazioni intracraniche
La magnetoencefalografia (MEG) misura campi magnetici debolissimi generati dall'attività elettrica cerebrale. Come l'EEG fornisce elevata risoluzione temporale e, in condizioni favorevoli, può facilitare alcune stime delle sorgenti; la geometria delle correnti e la tecnologia di registrazione introducono però specifiche limitazioni. In alcune situazioni cliniche o di ricerca vengono impiegate registrazioni intracraniche, mediante elettrodi posti direttamente su o nel tessuto nervoso. Queste possono offrire informazioni locali di grande valore, ma sono invasive e si usano entro condizioni cliniche, etiche e metodologiche rigorose.
MRI strutturale e tecniche di diffusione
La risonanza magnetica (MRI) sfrutta proprietà fisiche dei nuclei atomici in un campo magnetico per generare immagini dei tessuti. Le sequenze strutturali permettono di valutare differenze anatomiche, volumi e in alcuni casi lesioni. Alcune tecniche basate sulla diffusione dell'acqua forniscono informazioni indirette sulla microstruttura e sull'orientamento delle fibre della sostanza bianca. La trattografia ricostruisce percorsi probabili secondo algoritmi e ipotesi: non garantisce l'esistenza anatomica di ogni percorso visualizzato, né la sua direzione di trasmissione.
Le immagini strutturali non misurano direttamente il pensiero in corso. Una differenza volumetrica fra gruppi non dimostra da sola quale esperienza l'abbia prodotta, né consente una diagnosi individuale affidabile se manca una validazione specifica. Inoltre algoritmi di segmentazione, qualità delle immagini, correzione del movimento e caratteristiche della popolazione possono influenzare i risultati. Il fatto che un'immagine sia dettagliata non la rende automaticamente libera da incertezza statistica.
fMRI e segnale BOLD
La risonanza magnetica funzionale (fMRI) utilizza spesso il contrasto BOLD, acronimo di blood-oxygen-level dependent: il segnale dipende da variazioni delle proprietà magnetiche del sangue legate all'ossigenazione e a processi vascolari associati all'attività cerebrale. In un esperimento si confrontano condizioni o si studiano variazioni nel tempo e fra regioni, tenendo conto di rumore e modelli statistici. La tecnica offre una localizzazione spaziale utile su scala millimetrica in molte applicazioni, ma la risposta emodinamica è più lenta dell'attività elettrica sottostante e può essere influenzata da variabili fisiologiche non neurali.
L'espressione «si è accesa l'area della memoria» nasconde due passaggi differenti. Primo, il segnale non è una misura diretta del contenuto mentale, bensì un indice emodinamico. Secondo, la presenza di attività in una regione associata a certe funzioni non consente di inferire in modo univoco quale processo psicologico sia presente. Questo errore è noto come inferenza inversa quando, dalla localizzazione di un'attivazione, si deduce senza adeguata specificità l'attivazione di un costrutto mentale. La forza dell'inferenza aumenta quando si conoscono la selettività delle risposte, la qualità del modello, le condizioni di confronto e altre prove indipendenti.
PET e traccianti radioattivi
La tomografia a emissione di positroni (PET) impiega traccianti radioattivi per studiare processi quali metabolismo, perfusione o, con traccianti appropriati, caratteristiche di alcuni sistemi neurochimici. La misurazione dipende dal tracciante utilizzato: non è corretto affermare che ogni PET mostri «il livello della dopamina», così come non si può dedurre direttamente l'esperienza soggettiva dalla distribuzione di un tracciante. L'impiego comporta esposizione a radiazioni ionizzanti e vincoli clinici e regolatori; per questo la scelta della tecnica tiene conto della domanda scientifica e del bilancio fra benefici e rischi.
TMS: perturbare temporaneamente un circuito
La stimolazione magnetica transcranica (TMS) sfrutta un campo magnetico variabile prodotto da una bobina vicina al cranio per indurre correnti elettriche nei tessuti cerebrali. Può facilitare o interferire, secondo protocollo e contesto, con l'attività di circuiti relativamente superficiali, consentendo di formulare ipotesi sul loro contributo causale a un compito. Gli effetti non sono sempre semplici né confinati al solo punto sottostante la bobina: dipendono da anatomia individuale, orientamento, intensità, stato del circuito e collegamenti di rete.
Un esperimento potrebbe misurare l'accuratezza nel riconoscere stimoli visivi prima e durante una perturbazione di una regione specifica, confrontandola con una condizione di controllo adeguata. Se cambia selettivamente la prestazione, aumenta la plausibilità che il circuito coinvolto contribuisca al compito, ma rimangono possibili effetti indiretti e non specifici da escludere. La TMS ha anche applicazioni cliniche in protocolli definiti; la presenza di un uso clinico non significa che ogni protocollo sperimentale migliori in modo generale memoria o intelligenza.
Confrontare tecniche e controllare gli artefatti
La scelta metodologica può essere riassunta secondo almeno quattro dimensioni: quale grandezza fisica viene osservata, quanto rapidamente la si misura, con quale dettaglio spaziale e quanto l'esperimento permetta inferenze causali. EEG e MEG sono potenti per il tempo; MRI strutturale e diffusione per proprietà anatomiche; fMRI per correlati emodinamici dell'attività; PET per processi definiti dal tracciante; TMS per perturbazioni funzionali. Nessuna singola tecnica è la «migliore» in assoluto e tutte richiedono condizioni di confronto, campioni appropriati, predefinizione ragionevole delle analisi e verifica della robustezza.
L'uso combinato di misure psicologiche e neuroscientifiche è spesso più informativo di una scansione isolata. Se un gruppo mostra un cambiamento di attività durante un compito di memoria, è importante conoscere anche accuratezza, tempi di risposta, strategie, differenze fra individui e controllo del movimento in scanner. Senza queste informazioni, un effetto neurale significativo può essere poco interpretabile dal punto di vista psicologico. La tabella 3.5 confronta in maniera sistematica i principali strumenti e i loro limiti.
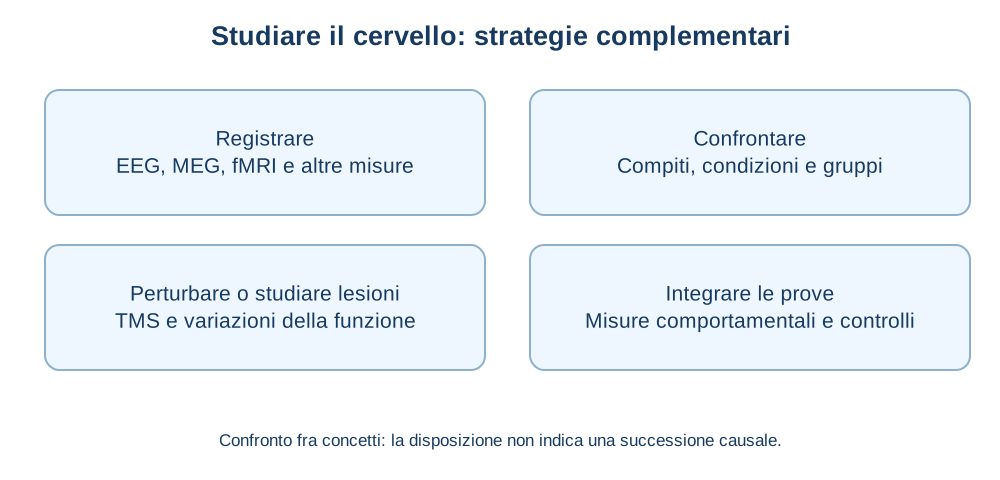
La figura 3.9 rappresenta tre strategie per studiare i sistemi cerebrali in forma originale, con le approssimazioni dichiarate in didascalia.
Tabella 3.5 — Tecniche neuroscientifiche: segnale, forza e limiti
Tecnica | Cosa misura | Vantaggio / limite centrale |
|---|---|---|
EEG / ERP | Potenziali elettrici aggregati | Tempo rapido / sorgenti poco dirette |
MEG | Campi magnetici da correnti neurali | Tempo rapido / modello delle sorgenti |
MRI strutturale | Proprietà magnetiche anatomiche | Dettaglio anatomico / non misura pensieri |
MRI diffusione | Diffusione dell’acqua nel tessuto | Orientamento fibre stimato / tratti fallibili |
fMRI BOLD | Variazioni emodinamiche | Localizzazione funzionale / segnale indiretto |
PET | Distribuzione di traccianti specifici | Informazioni molecolari / uso radioisotopi |
TMS | Risposta a perturbazione magnetica | Ipotesi causali / effetti di rete |
La tabella sintetizza distinzioni che vanno lette insieme alle spiegazioni del testo.
Tabella 3.6 — Confronto degli errori inferenziali più frequenti
Osservazione | Deduzione non giustificata | Analisi necessaria |
|---|---|---|
Una regione mostra BOLD maggiore | La persona prova una sola emozione specifica | Specificità della regione e compito |
Il volume di un’area differisce | L’esperienza ha causato la differenza | Longitudinale, controlli, meccanismo |
Due aree mostrano segnali correlati | Esiste un collegamento diretto | Connettività anatomica e cause comuni |
Un tratto è ereditabile | Il destino individuale è fissato | Contesto, distribuzioni, interventi |
La tabella sintetizza distinzioni che vanno lette insieme alle spiegazioni del testo.
3.13 Neuroscienze computazionali, neurodiversità e interfacce cervello-macchina
Perché servono modelli computazionali
Le neuroscienze computazionali sviluppano modelli matematici e simulazioni che collegano meccanismi neurali e fenomeni osservabili. Alcuni modelli rappresentano conduttanze e dinamiche di membrana; altri descrivono reti di neuroni che si modificano con l'esperienza; altri ancora si concentrano su calcoli funzionali, come stime di probabilità, errori di previsione e selezione di azioni. Un modello è utile quando chiarisce quali ipotesi produce e in quali condizioni potrebbe fallire, non semplicemente quando imita un comportamento visto in laboratorio.
Un esempio intuitivo è il segnale di errore di previsione della ricompensa, cioè la differenza fra un esito effettivamente ottenuto e quello atteso in base all'esperienza. In modelli di apprendimento per rinforzo, tale segnale contribuisce ad aggiornare le stime sul valore delle azioni. La forma elementare può essere espressa come δ = r + γV(s') − V(s), dove δ è l'errore di previsione, r la ricompensa immediata, γ un fattore che pesa gli esiti futuri, V(s') il valore atteso del nuovo stato e V(s) il valore del precedente. È una rappresentazione teorica semplificata: non una formula universale con la quale leggere tutti gli impulsi dopaminergici di ogni persona.
Le reti neurali artificiali sono sistemi computazionali ispirati in modo molto astratto ad alcune proprietà dell'elaborazione distribuita. Il nome «neurale» non significa che ogni unità artificiale replichi un neurone biologico con membrana, sinapsi, metabolismo e segnali gliali. Possono essere strumenti per esplorare ipotesi sulla percezione o l'apprendimento, ma una prestazione simile a quella umana non dimostra identità di meccanismo. Dall'altra parte, confrontare modelli artificiali e cervello può aiutare a scoprire quali proprietà di una soluzione dipendano dal compito anziché da una struttura biologica particolare.
Neurodiversità e variabilità delle traiettorie
Il concetto di neurodiversità riconosce la varietà dei modi in cui le persone percepiscono, apprendono, comunicano ed elaborano informazioni. È frequentemente discusso in relazione all'autismo, al disturbo da deficit di attenzione e iperattività e alle differenze specifiche dell'apprendimento, ma non è una diagnosi medica né un elenco di persone biologicamente separate dal resto della popolazione. L'espressione valorizza la varietà umana e invita a considerare come ambienti e istituzioni possano facilitare o ostacolare la partecipazione.
Riconoscere differenze non significa negare le difficoltà, le disabilità o il bisogno di sostegni. Le persone possono desiderare servizi clinici e accomodamenti e, nello stesso tempo, rifiutare che la propria identità sia descritta esclusivamente in termini di deficit. Le caratteristiche di un gruppo sono eterogenee e non possono essere dedotte da stereotipi, né da una singola scansione cerebrale. La ricerca responsabile distingue risultati medi, variabilità individuale, qualità della vita e preferenze delle persone coinvolte, evitando di trasformare la neurodiversità in una nuova categoria rigida.
Interfacce cervello-macchina
Le interfacce cervello-computer o cervello-macchina cercano di tradurre segnali neurali in comandi utili per dispositivi esterni. Alcuni sistemi impiegano EEG non invasivo; altri utilizzano sensori impiantati che registrano segnali più localizzati e richiedono interventi clinici. Un algoritmo apprende relazioni statistiche fra pattern di attività e azioni desiderate, come la selezione di lettere o il controllo di un cursore. La prestazione dipende da qualità del segnale, addestramento, stabilità nel tempo, dispositivo e condizioni dell'utente.
Questi sistemi possono sostenere possibilità importanti per persone con gravi limitazioni motorie, ma la divulgazione spesso esagera parlando di lettura indiscriminata dei pensieri. Un classificatore addestrato a riconoscere un ristretto insieme di comandi in condizioni sperimentali non sa automaticamente ricostruire ricordi, intenzioni private o contenuti mentali arbitrari. I sistemi più avanzati sollevano questioni etiche riguardanti consenso, sicurezza, manutenzione, proprietà e riservatezza dei dati neurali. Le promesse tecnologiche devono essere valutate considerando i risultati ottenuti fuori dal laboratorio e la qualità della vita degli utilizzatori.
Una psicologia neuroscientifica, non una riduzione dell'essere umano
La prospettiva neuroscientifica diventa particolarmente feconda quando collabora con altri livelli esplicativi. Una differenza nel comportamento può dipendere da circuiti e neurotrasmettitori, ma anche da significati, norme sociali, sviluppo e apprendimenti. Non esiste contraddizione fra affermare che ogni esperienza richieda un organismo biologico e riconoscere che un certo fenomeno si spieghi meglio, in un dato contesto, attraverso una variabile psicologica o sociale. La domanda scientifica è quale modello consenta predizioni attendibili, manipolazioni informative e interpretazioni prudenti.
La sfida contemporanea non consiste soltanto nel ottenere immagini sempre più dettagliate, bensì nel collegare ciò che accade alle cellule con ciò che una persona vive e fa, mantenendo chiaro il livello di incertezza. Gli strumenti saranno sempre più potenti; ciò rende ancora più importanti metodi riproducibili, comparazioni adeguate e una terminologia che non confonda il dato biologico con interpretazioni eccessive.
Approfondimenti scientifici: esperimenti, risultati e limiti
Studio A — Correnti ioniche e modello del potenziale d'azione
Domanda scientifica. Quali processi fisici e quali correnti di membrana producono il potenziale d'azione? Impostazione. Negli studi classici furono utilizzate fibre nervose particolarmente grandi del calamaro per misurare correnti in condizioni controllate mediante tecniche elettrofisiologiche. Variabili. Si manipolava la tensione di membrana e si misuravano correnti con differenti proprietà temporali. Risultato principale. Un modello dinamico con contributi distinti di sodio e potassio riproduceva numerose proprietà del segnale. Interpretazione. Il potenziale d'azione emerge da una sequenza coordinata di cambiamenti delle conduttanze ioniche. Limiti. L'assone di calamaro è una preparazione sperimentale particolare e il modello necessita di adattamenti per altre cellule e condizioni. La precisione del meccanismo di membrana non implica una spiegazione diretta di funzioni cognitive complesse.
Studio B — Apprendimento sinaptico in Aplysia
Domanda scientifica. Cambiamenti relativamente semplici del comportamento possono essere collegati a modifiche nelle sinapsi identificabili? Impostazione. Ricerche sperimentali su circuiti di riflessi difensivi in Aplysia hanno esaminato gli effetti della ripetizione di stimoli e di eventi salienti sull'efficacia delle connessioni. Risultato generale. In condizioni appropriate, abituazione e sensibilizzazione si accompagnano a modificazioni della trasmissione; la durata di alcuni cambiamenti dipende da processi molecolari ulteriori. Interpretazione. L'esperienza può cambiare la forza funzionale di connessioni esistenti. Limiti. Le forme di apprendimento studiate sono circoscritte e non sono equivalenti a memoria autobiografica, linguaggio o ragionamento umano.
Studio C — Conoscenza spaziale dei tassisti londinesi
Domanda scientifica. La lunga esperienza di navigazione urbana è associata a differenze misurabili nell'anatomia ippocampale? Disegno. Confronto di immagini MRI strutturali di tassisti e controlli, accompagnato dall'analisi dei rapporti con la durata dell'esperienza professionale. Risultati. Lo studio originario riportò differenze regionali nel volume ippocampale e associazioni con gli anni di pratica, con distribuzione non uniforme lungo l'ippocampo. Limiti. La selezione professionale e possibili differenze preesistenti impediscono di attribuire tutta la differenza osservata all'esperienza in modo causale con il solo disegno trasversale. Studi successivi con gruppi di confronto più specifici hanno contribuito a raffinare le ipotesi.
Studio D — Allenamento nella giocoleria e MRI
Domanda scientifica. L'apprendimento di un'abilità motoria complessa può essere accompagnato da variazioni strutturali misurabili nel cervello adulto? Disegno. Misure ripetute di MRI in partecipanti sottoposti ad allenamento rispetto a condizioni di confronto. Risultato generale. Sono state osservate variazioni localizzate in misure macroscopiche della sostanza grigia, associate all'acquisizione e alla modifica successiva della pratica. Interpretazione. L'esperienza può accompagnarsi a cambiamenti anatomici misurabili. Limiti. La MRI non identifica da sola la base cellulare della variazione e i risultati vanno interpretati tenendo conto di campioni, procedure statistiche e repliche.
Studio E — La perturbazione magnetica della corteccia motoria
Domanda scientifica. È possibile modificare transitoriamente l'attività della corteccia umana senza intervento chirurgico? Procedura. L'applicazione di stimoli magnetici esterni alla testa può indurre correnti in tessuti corticali e, in specifiche condizioni, risposte motorie misurabili. Risultato storico. Le prime dimostrazioni hanno contribuito allo sviluppo della TMS moderna. Interpretazione. La perturbazione fisica aggiunge una forma di prova sui circuiti che può essere integrata con registrazioni e compiti psicologici. Limiti. Gli effetti si propagano attraverso reti e possono dipendere da variabili individuali; una risposta motoria non basta per spiegare una funzione mentale complessa.
Collegamenti interdisciplinari
La biofisica permette di comprendere perché gli ioni attraversano una membrana, la chimica chiarisce la struttura dei trasmettitori, la genetica analizza le differenze biologiche e l'informatica offre modelli formali del comportamento delle reti. La medicina studia alterazioni del sistema e interventi, mentre filosofia e psicologia aiutano a specificare che cosa conti come spiegazione di un'esperienza. In economia comportamentale, per esempio, un modello della scelta può descrivere l'influenza dell'incertezza senza pretendere che ogni parametro della decisione corrisponda a una singola area cerebrale. La collaborazione fra livelli aumenta la potenza esplicativa solo quando ogni inferenza viene sostenuta da misure appropriate.
Errori frequenti e falsi miti
«Usiamo soltanto il dieci per cento del cervello». Non esiste una quota fissa del cervello normalmente inattiva e pronta ad essere sbloccata. Le diverse regioni partecipano a compiti e stati variabili, e persino il riposo comprende attività organizzata. Ciò non significa che tutte le cellule siano simultaneamente attive alla massima intensità.
«Esistono persone razionali con emisfero sinistro e creative con emisfero destro». Alcune funzioni presentano lateralizzazione, ma le attività complesse dipendono da cooperazione e connessioni fra emisferi. La classificazione binaria dei tipi umani non è un risultato neuroscientifico accreditato.
«La dopamina è il piacere e la serotonina è la felicità». I neurotrasmettitori partecipano a molteplici circuiti e agiscono attraverso diversi recettori. Le etichette sono metafore fuorvianti quando vengono presentate come meccanismi esaustivi.
«Se una regione si attiva nella fMRI, sappiamo quale pensiero è presente». La risposta BOLD è indiretta e una regione può contribuire a molti processi. Per inferire un contenuto mentale servono compiti, modelli e validazioni specifiche.
«L'ereditabilità di un tratto dimostra che non si può cambiare». L'ereditabilità riguarda la variabilità in una popolazione e in un ambiente; non è una previsione inevitabile del futuro di una singola persona.
«La plasticità permette al cervello di guarire da qualunque danno». La riorganizzazione esiste e può essere clinicamente importante, ma ha vincoli e non garantisce il recupero completo. Le promesse terapeutiche vanno testate.
Sintesi ragionata
Il sistema nervoso è un'organizzazione multilivello in cui cellule eccitabili e cellule gliali sostengono comunicazione, metabolismo e adattamento. Il potenziale d'azione nasce dall'interazione fra gradienti ionici e canali di membrana; le sinapsi trasformano gli impulsi in segnali chimici o elettrici che vengono integrati in reti dinamiche. Gli effetti dei neurotrasmettitori dipendono da recettori, posizione e stato del circuito, non da significati psicologici fissi attribuiti alle molecole.
Encefalo, midollo, sistema periferico ed endocrino collaborano nel regolare percezione, azione e fisiologia. Le regioni cerebrali hanno specializzazioni importanti, ma funzioni complesse come memoria, linguaggio ed emozioni coinvolgono circuiti distribuiti. Geni ed esperienze interagiscono durante lo sviluppo, e la plasticità rende possibile cambiamenti biologici rilevanti anche in età adulta, senza annullare i vincoli dell'organismo.
Infine le tecniche neuroscientifiche forniscono misure diverse: segnali elettrici, campi magnetici, struttura anatomica, flusso emodinamico, distribuzione di traccianti e risposte a perturbazioni. La disciplina progredisce quando queste osservazioni vengono confrontate con modelli teorici, prestazioni comportamentali e controlli metodologici. Una buona spiegazione neuropsicologica è precisa su ciò che misura e prudente su ciò che deduce.
Glossario di capitolo
Acetilcolina. Molecola segnale che agisce in sinapsi neuromuscolari, autonomiche e in diversi circuiti centrali.
ACTH. Ormone ipofisario che stimola la corticale surrenale a rilasciare glucocorticoidi, incluso il cortisolo.
Afferenza. Trasmissione di un segnale dalla periferia o da una regione verso una sede di elaborazione.
Allele. Versione alternativa di una sequenza genetica in una determinata posizione del genoma.
Amigdala. Complesso di nuclei sottocorticali coinvolti in elaborazione della rilevanza e apprendimenti emotivi.
Antagonista. Sostanza che si lega a un recettore ostacolando l’effetto di un agonista senza produrre la stessa attivazione.
Assone. Prolungamento neuronale specializzato nella propagazione di segnali verso altre cellule.
Astrocita. Cellula gliale centrale coinvolta in supporto metabolico, omeostasi e interazioni neurovascolari e sinaptiche.
ATP. Adenosina trifosfato, molecola utilizzata dalle cellule per alimentare numerosi processi energetici.
Barriera ematoencefalica. Insieme di proprietà selettive dei vasi cerebrali che regola gli scambi fra sangue e tessuto nervoso.
BOLD. Contrasto di risonanza funzionale associato a variazioni delle proprietà magnetiche del sangue dipendenti dall’ossigenazione.
Canale ionico. Proteina di membrana che permette il passaggio regolato di specifici ioni.
Cellula di Schwann. Cellula gliale periferica coinvolta nella mielinizzazione e nel sostegno degli assoni.
Cervelletto. Parte dell’encefalo importante per coordinazione, temporizzazione e apprendimento motorio, con ulteriori ruoli cognitivi.
Conduzione saltatoria. Propagazione negli assoni mielinizzati con rigenerazione del potenziale soprattutto ai nodi di Ranvier.
Connettività anatomica. Descrizione dei percorsi fisici e delle connessioni fra strutture nervose.
Connettività efficace. Descrizione modellistica delle influenze direzionali fra componenti di una rete.
Connettività funzionale. Associazione statistica fra serie di segnali registrati in differenti regioni.
Connettoma. Mappa delle connessioni nervose a una scala e con un metodo di misura specificati.
Corteccia cerebrale. Strato di tessuto nervoso che riveste gran parte degli emisferi, con organizzazione cellulare e funzionale complessa.
Cortisolo. Glucocorticoide prodotto dalla corticale surrenale, coinvolto nella regolazione metabolica e nella risposta allo stress.
Dendrite. Prolungamento neuronale che riceve e integra segnali sinaptici, spesso mediante elaborazioni locali.
Depolarizzazione. Variazione del potenziale di membrana verso valori meno negativi rispetto al riferimento.
Dopamina. Neuromodulatore e neurotrasmettitore coinvolto in più circuiti, inclusi movimento, motivazione e apprendimento.
EEG. Elettroencefalografia, registrazione di differenze di potenziale elettrico misurate mediante elettrodi.
Efferenza. Trasmissione di un segnale in uscita da una sede di elaborazione verso un effettore o altra struttura.
Epigenetica. Studio di sistemi che regolano l’attività del genoma senza necessariamente modificarne la sequenza.
Ereditabilità. Quota della variabilità fenotipica di una popolazione associata a differenze genetiche, sotto assunzioni definite.
Ereditarietà. Trasmissione intergenerazionale di informazione genetica, distinta dall’ereditabilità statistica di un carattere.
ERP. Potenziale evento-correlato, componente di segnali elettrici stimata in relazione temporale con eventi sperimentali.
Fessura sinaptica. Spazio extracellulare fra componenti presinaptica e postsinaptica di una sinapsi chimica.
Fisicalismo. Prospettiva filosofica secondo cui i fenomeni mentali appartengono al mondo fisico.
fMRI. Risonanza magnetica funzionale, spesso basata su segnali emodinamici associati indirettamente all’attività neurale.
GABA. Acido gamma-amminobutirrico, neurotrasmettitore fondamentale per molte trasmissioni inibitorie centrali.
Ganglio. Raggruppamento di corpi neuronali nel sistema nervoso periferico.
Gene. Regione del DNA coinvolta nella produzione e nella regolazione di prodotti cellulari funzionali.
Glia. Insieme di popolazioni cellulari nervose con funzioni metaboliche, immunitarie, di regolazione e mielinizzazione.
Gradiente elettrochimico. Forza complessiva derivante da differenze di concentrazione e di potenziale elettrico.
GWAS. Studio di associazione esteso al genoma che ricerca correlazioni fra varianti genetiche e caratteri.
Interneurone. Neurone che collega e integra informazioni entro circuiti nervosi.
Interocezione. Elaborazione dei segnali che informano sullo stato interno dell’organismo.
Iperpolarizzazione. Spostamento del potenziale della membrana verso valori più negativi rispetto a un riferimento.
Ipotalamo. Struttura diencefalica importante nella regolazione endocrina, autonoma e omeostatica.
Ippocampo. Struttura temporale mediale importante per memoria episodica e rappresentazioni relazionali e spaziali.
Lateralizzazione. Distribuzione asimmetrica di alcune funzioni fra i due emisferi cerebrali.
LTD. Depressione a lungo termine, riduzione durevole dell’efficacia sinaptica in specifiche condizioni sperimentali.
LTP. Potenziazione a lungo termine, aumento persistente dell’efficacia di specifiche sinapsi.
MEG. Magnetoencefalografia, misura dei campi magnetici prodotti da attività elettrica cerebrale aggregata.
Microglia. Cellule immunitarie residenti del sistema nervoso centrale coinvolte in sorveglianza e risposta tessutale.
Mielina. Rivestimento lipidico di segmenti assonali che contribuisce alla conduzione efficiente.
Modulatore allosterico. Sostanza che modifica la risposta di un recettore attraverso un sito diverso da quello principale.
Neurodiversità. Concetto che riconosce la varietà delle configurazioni neurocognitive e invita a considerare differenze e contesto.
Neuromodulazione. Modifica della dinamica di neuroni o reti attraverso messaggeri e meccanismi che influenzano l’eccitabilità.
Neurone. Cellula eccitabile specializzata nell’integrazione e trasmissione di segnali.
Neurotrasmettitore. Molecola liberata da cellule che modifica l’attività di altre cellule attraverso recettori.
Nodo di Ranvier. Interruzione della mielina dove spesso si concentra la rigenerazione del potenziale d’azione.
Nuclei della base. Gruppo di strutture sottocorticali implicate in circuiti di azione e apprendimento.
Oligodendrocita. Cellula gliale centrale che produce segmenti di mielina.
Omeostasi. Regolazione dinamica di condizioni fisiologiche entro intervalli funzionali.
Parasimpatico. Divisione del sistema autonomo con importanti funzioni viscerali di regolazione e recupero.
Periodo refrattario. Intervallo successivo a uno spike durante il quale la risposta a un nuovo stimolo è limitata.
PET. Tomografia a emissione di positroni, tecnica con traccianti radioattivi per misure fisiologiche specifiche.
Plasticità cerebrale. Capacità delle reti nervose di modificare proprietà funzionali o strutturali in diverse condizioni.
Potenziale di riposo. Differenza di potenziale fra interno ed esterno di una membrana in condizioni basali.
Potenziale d’azione. Evento elettrico rigenerativo che può propagarsi lungo l’assone.
Potenziale postsinaptico. Variazione di potenziale della cellula ricevente in seguito a un segnale sinaptico.
Predizione della ricompensa. Stima di un esito futuro che può essere aggiornata sulla base dell’esperienza.
Propriocezione. Sistema sensoriale che informa sulla posizione e sul movimento delle parti del corpo.
Recettore ionotropico. Recettore che comprende un canale ionico modulato dal legame di un ligando.
Recettore metabotropico. Recettore che agisce mediante vie di segnalazione intracellulari.
Ricaptazione. Processo di recupero di molecole extracellulari tramite trasportatori cellulari.
Simpatico. Divisione del sistema autonomo coinvolta anche nella mobilitazione fisiologica.
Sinapsi. Sede funzionale di comunicazione fra neuroni o fra neurone e un’altra cellula.
Sistema nervoso centrale. Encefalo e midollo spinale.
Sistema nervoso periferico. Nervi e gangli esterni all’encefalo e al midollo spinale.
Soma. Corpo cellulare del neurone, contenente il nucleo e numerosi organelli.
Talamo. Insieme di nuclei diencefalici con diverse funzioni di integrazione e collegamento corticale.
TMS. Stimolazione magnetica transcranica, tecnica che induce correnti nei tessuti cerebrali con campi magnetici variabili.
Trattografia. Stima algoritmica di percorsi di fibre a partire da misure di diffusione, soggetta a incertezze.
Variabile poligenica. Carattere influenzato da più varianti genetiche, spesso con effetti piccoli e distribuiti.