
Un viaggio dalle origini triassiche ai dinosauri viventi: gli uccelli. Anatomia, ambienti e fossili permettono di ricostruire una storia lunga oltre duecento milioni di anni, popolata da animali molto diversi per dimensioni, alimentazione e comportamento.
Le illustrazioni sono ricostruzioni paleoartistiche realizzate con intelligenza artificiale. Didascalie e testo distinguono i caratteri documentati dai fossili dalle ipotesi su colori, tessuti molli e ambientazione.
6. Ornitopodi e adrosauridi
Che cosa sono gli ornitopodi
Gli Ornithopoda costituiscono una delle grandi radiazioni evolutive degli ornitischi. Il loro successo non si spiega attraverso una sola caratteristica spettacolare, come le corna dei ceratopsidi o le corazze degli anchilosauri, ma attraverso una combinazione di efficienza locomotoria, adattamenti alimentari e capacità di occupare ambienti differenti. All’interno del gruppo si incontrano forme relativamente piccole e leggere, prevalentemente bipedi, e grandi erbivori capaci di spostarsi anche sulle quattro zampe. La classificazione delle forme più primitive è soggetta a revisione: alcuni piccoli ornitischi storicamente definiti “ornitopodi basali” non risultano necessariamente appartenere al clade Ornithopoda nelle analisi più recenti.
Il nome Ornithopoda significa approssimativamente “piede d’uccello”, un riferimento storico alla struttura degli arti posteriori, non un’indicazione di stretta parentela con gli uccelli moderni. Questi ultimi derivano dai teropodi, cioè da un ramo differente dei dinosauri. La distinzione tra somiglianza funzionale e parentela evolutiva è fondamentale in paleontologia: arti che svolgono funzioni analoghe possono essersi evoluti in linee separate.
Nel linguaggio divulgativo, “dinosauri dal becco d’anatra” indica spesso tutti gli adrosauridi, ma il becco cheratinoso non è esclusivo della famiglia Hadrosauridae. Il profilo anteriore del muso degli adrosauridi è particolarmente riconoscibile; tuttavia, il loro successo dipese soprattutto dal funzionamento coordinato di mandibole, muscolatura e complessi apparati dentari.
Origini, diversificazione e distribuzione
I fossili dei primi ornitischi e dei dinosauri affini agli ornitopodi consentono di ricostruire un quadro evolutivo complesso. Nel Giurassico erano già presenti piccoli erbivori e onnivori, ma la composizione precisa dei gruppi basali cambia a seconda della matrice di caratteri e degli esemplari considerati. Nel Cretaceo inferiore gli iguanodonti aumentarono in dimensioni e diversità; nel Cretaceo superiore gli adrosauridi divennero fra gli erbivori più diffusi in numerosi ecosistemi dell’emisfero settentrionale.
La distribuzione geografica del gruppo non è un elenco di località equivalenti: fossili provenienti da livelli di età diverse non documentano comunità coesistenti. Il confronto corretto richiede l’identificazione delle formazioni geologiche, delle successioni stratigrafiche e delle incertezze di datazione. Inoltre la presenza di una specie in una regione non dimostra che essa fosse confinata a quel territorio; riflette anche le probabilità di fossilizzazione, l’esposizione delle rocce e l’intensità della ricerca.
Lo studio quantitativo dell’evoluzione dentaria ha messo in luce più fasi di accelerazione nell’innovazione morfologica, senza una corrispondenza diretta e semplice con la diversificazione delle piante a fiore. Questo risultato invita a evitare spiegazioni monocausali: l’evoluzione alimentare può essere influenzata da opportunità ecologiche, eredità anatomica e selezione naturale senza essere determinata da una sola trasformazione botanica.
La locomozione: bipedia e quadrupedia
Gli ornitopodi più piccoli possedevano generalmente arti posteriori relativamente lunghi, strutture compatibili con una locomozione prevalentemente bipede. In molte forme più grandi il tronco e gli arti anteriori si modificarono in maniera compatibile con l’impiego delle quattro zampe almeno durante una parte degli spostamenti. Parlare di bipedia e quadrupedia come categorie rigidamente opposte è quindi spesso fuorviante: un animale poteva modificare postura a seconda di velocità, attività ed età.
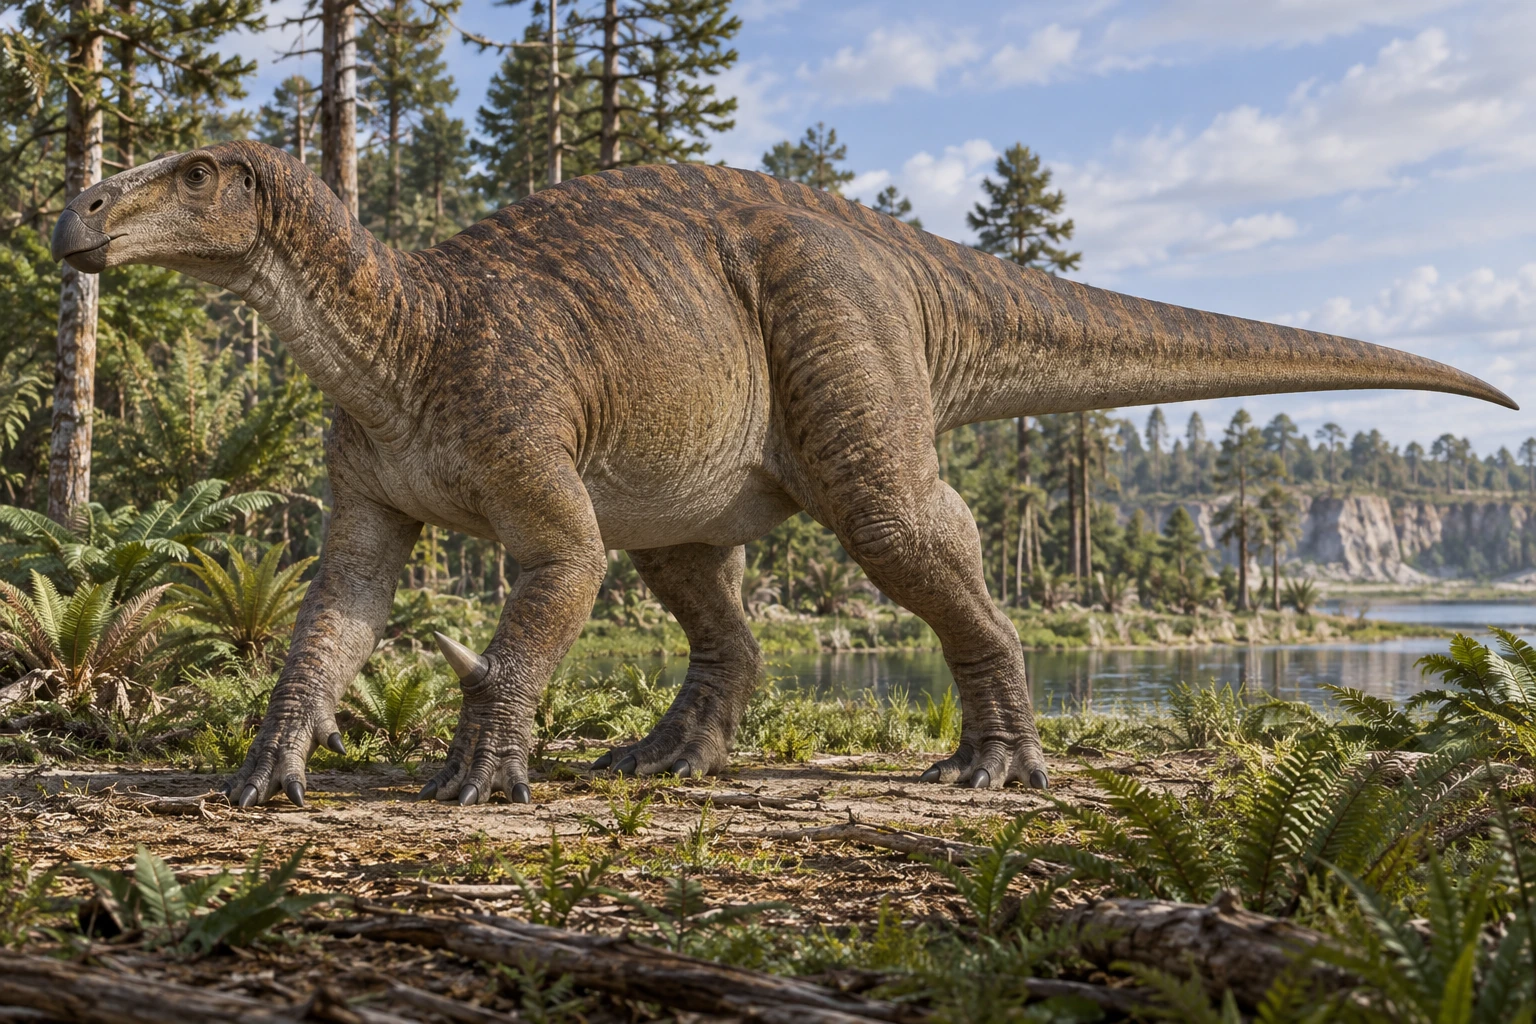
Iguanodon bernissartensis mostra un assetto degli arti anteriori diverso da quello delle forme più gracili. Le dita della mano non avevano tutte la medesima funzione: la regione centrale contribuiva alla resistenza del carico, mentre il pollice era trasformato in una robusta punta ossea. La tradizionale ricostruzione di Iguanodon come un animale simile a un grande canguro, con il busto verticale e la coda trascinata al suolo, è stata superata dalla combinazione di nuovi studi sullo scheletro e sull’equilibrio.
Anche le impronte fossilizzate possono aiutare a ricostruire andatura e distribuzione del peso, ma la loro attribuzione a un genere particolare raramente è sicura. Morfologie simili del piede possono generare impronte comparabili e le caratteristiche del sedimento alterano profondamente la forma conservata. Le ricostruzioni biomeccaniche sono quindi inferenze fondate su dati, non registrazioni dirette del movimento.
Anatomia cranica, becco e batterie dentarie
La trasformazione più importante nella storia alimentare di questo gruppo coinvolse il cranio. Molti ornitopodi disponevano di un rivestimento corneo del margine anteriore delle mascelle, adatto a strappare e selezionare il materiale vegetale. Le file posteriori dei denti erano invece specializzate nel taglio, nella frantumazione e nella macinazione. Nei diversi gruppi cambiarono la forma delle corone, il numero di posizioni dentarie e il modo in cui le nuove generazioni di denti sostituivano quelle usurate.
Negli adrosauridi il sistema raggiunse una complessità straordinaria: la cosiddetta batteria dentaria era costituita da molte piccole unità sovrapposte, con denti a differenti stadi di formazione e di consumo. Non equivaleva a un’unica fila di denti enormi. Studi istologici hanno mostrato che il sistema integrava tessuti dentari, legamenti e superfici consumate in un apparato funzionale continuo. La presenza di molte centinaia di denti in una mandibola non significa che tutti lavorassero simultaneamente nel medesimo modo.
Uno studio del 2016 ha dimostrato che l’evoluzione della batteria dentaria dipese anche da modificazioni nella temporizzazione dello sviluppo e della sostituzione dei denti. La masticazione degli adrosauridi non era identica a quella dei mammiferi ruminanti: il risultato di elaborazione meccanica del cibo poteva somigliarle per certi aspetti, ma derivava da strutture anatomiche e traiettorie evolutive differenti.
Iguanodontia e gli iguanodonti europei
Il nome Iguanodon occupa un posto centrale nella storia della paleontologia. Era tra i primi dinosauri descritti nell’Ottocento e fu oggetto di ricostruzioni radicalmente differenti nel corso dei decenni. Gli esemplari rinvenuti a Bernissart, in Belgio, fornirono un materiale scheletrico eccezionale che permise di correggere numerosi errori precedenti. La vicenda dimostra perché il significato scientifico di un fossile non si riduca al suo impatto mediatico: il suo valore consiste nella quantità e nella qualità dei caratteri anatomici osservabili.
L’uso storico del genere Iguanodon era molto più ampio di quello attualmente riconosciuto. Diversi fossili un tempo assegnati a Iguanodon sono stati trasferiti ad altri generi, fra cui Mantellisaurus, sulla base di differenze del bacino, degli arti e del resto dello scheletro. Per questo un catalogo affidabile deve specificare sempre il binomio completo e, quando necessario, la storia delle attribuzioni.
I grandi iguanodonti non rappresentavano un semplice stadio intermedio inevitabile verso gli adrosauridi: erano organismi dotati di adattamenti propri. La classificazione filogenetica non va letta come una scala di progresso dal “primitivo” al “perfetto”; differenti rami potevano coesistere, specializzarsi e scomparire indipendentemente.
Hadrosauroidea: il percorso verso il becco d’anatra
Hadrosauroidea comprende un insieme ampio di iguanodonti più strettamente vicini agli adrosauridi, inclusi taxa esterni alla famiglia Hadrosauridae. Questa distinzione è essenziale: non tutti gli adrosauroidi sono adrosauridi. Nel tempo si osservano trasformazioni della regione del muso, del bacino, del cranio e soprattutto dell’apparato dentario, ma l’ordine esatto delle acquisizioni dei caratteri dipende dalla filogenesi ricostruita.
Esempi come Eolambia, Bactrosaurus, Probactrosaurus e Gilmoreosaurus aiutano a indagare la varietà delle forme non completamente inserite nella radiazione degli adrosauridi derivati. L’interpretazione precisa delle loro relazioni varia fra studi: per alcune specie, frammentarietà o differenze individuali rendono difficile attribuire un posto stabile all’albero evolutivo.
La presenza di adrosauroidi in Asia, Europa e America settentrionale suggerisce una storia biogeografica complessa. Le ricostruzioni dei collegamenti terrestri e delle dispersioni devono combinare fossili datati e paleogeografia; la semplice somiglianza fra crani provenienti da due continenti non dimostra da sola un evento migratorio specifico.
Hadrosauridae: saurolofini e lambeosaurini
All’interno di Hadrosauridae, Saurolophinae e Lambeosaurinae comprendono molte delle forme più conosciute. I saurolofini includono grandi erbivori come Edmontosaurus, Gryposaurus e Saurolophus, con muso e regione nasale strutturati in modi differenti. I lambeosaurini comprendono invece numerose specie con complesse creste craniche, fra cui Corythosaurus, Lambeosaurus e Parasaurolophus. L’assenza di una grande cresta cava in un saurolofino non implica l’assenza di segnali visivi o di altre forme di comunicazione.
Le superfici craniche, la struttura delle ossa nasali e la crescita dell’individuo sono fondamentali nell’identificazione delle specie. In diversi taxa la forma del capo cambiava durante la vita, cosicché individui giovani e adulti potrebbero apparire sorprendentemente diversi. Le valutazioni tassonomiche richiedono campioni comparativi, anziché fondarsi su una sola silhouette del cranio.
Le enormi dimensioni raggiunte da alcune specie non implicavano una dieta uniforme. La forma del muso, l’usura dei denti, gli isotopi, il contesto paleoambientale e gli eventuali contenuti intestinali fossili permettono di discutere le strategie alimentari, ma difficilmente producono un elenco preciso delle piante ingerite da ogni popolazione.
Creste, segnali e comunicazione
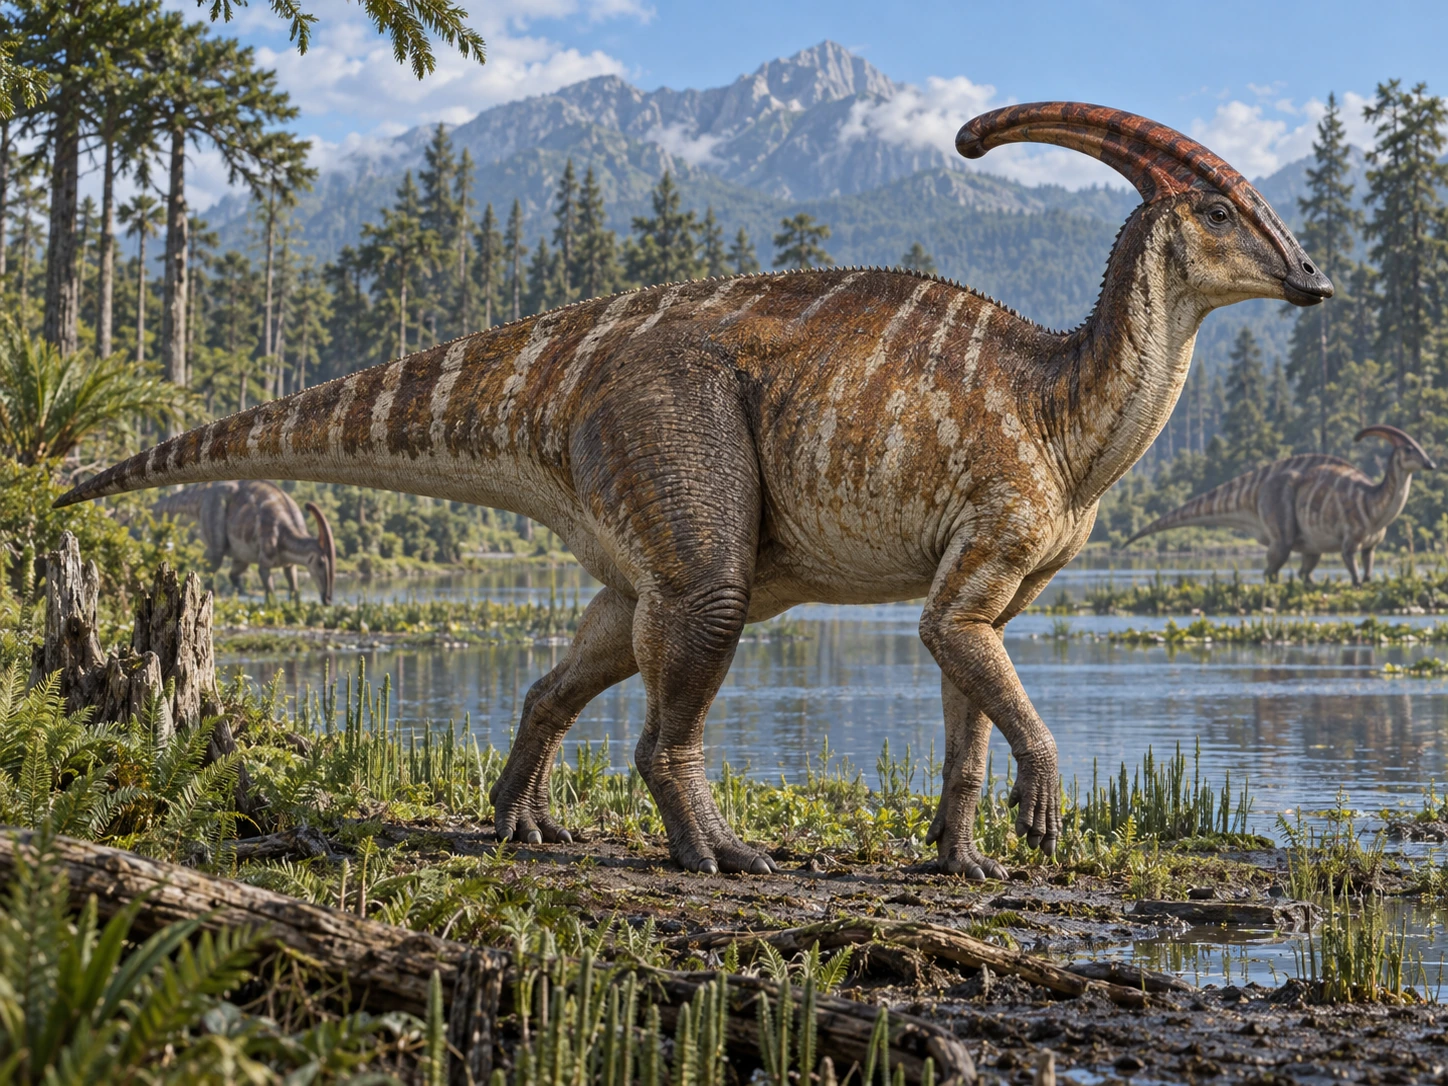
Le creste dei lambeosaurini sono fra gli esempi più caratteristici di strutture craniche complesse. In Parasaurolophus le ossa nasali partecipavano alla formazione di una lunga cresta che ospitava passaggi dell’aria allungati; ciò rende plausibile un ruolo nella produzione e nella modulazione dei suoni. Modelli acustici possono stimare frequenze e risonanze compatibili con l’anatomia, ma non riproducono con certezza il verso reale dell’animale, perché non conosciamo completamente i tessuti molli né le modalità di vocalizzazione.
Le creste potevano svolgere più funzioni contemporaneamente: riconoscimento tra individui, segnali nelle interazioni sociali e differenze legate all’età o al sesso. Tuttavia il dimorfismo sessuale è difficile da provare nei fossili in assenza di campioni sufficienti e di attribuzioni ontogenetiche affidabili. Non è corretto trasformare una possibilità evolutiva in una certezza comportamentale.
Alcune strutture esterne potrebbero essere state amplificate da tessuti molli non conservati. Le ricostruzioni pittoriche restano utili per visualizzare scenari plausibili, ma vanno distinte dalle osservazioni dirette su osso, impronte cutanee e altre evidenze fossilifere.
Alimentazione, ambienti e reti ecologiche
Gli ornitopodi occupavano differenti livelli della vegetazione e una pluralità di ambienti continentali. La robustezza del becco e le superfici masticatorie permettevano di raccogliere e trasformare grandi quantità di materia vegetale, ma la disponibilità delle piante variava con la latitudine, la stagione e l’ambiente. È sbagliato immaginare tutti gli adrosauridi mentre mangiano esclusivamente le medesime foglie.
In molte comunità del Cretaceo superiore gli adrosauridi convivevano con ceratopsidi, ankilosauri e grandi teropodi. L’interazione ecologica comprendeva competizione, predazione, uso differente degli habitat e possibile segregazione delle risorse. La presenza di esemplari di età diverse nella medesima formazione non dimostra necessariamente la composizione di un branco vivente: occorre valutare come i resti siano stati trasportati e accumulati.
L’interpretazione delle piante disponibili deve tenere conto dei pollini e delle spore fossili, dei legni, dei sedimenti e degli altri fossili associati. La coevoluzione con le angiosperme è un tema importante ma non si deve sostenere che l’aumento della diversità dei fiori spieghi, da solo, tutta la radiazione degli adrosauridi.
Crescita, nidificazione e prove sociali
In varie specie di adrosauridi il record fossile comprende individui molto giovani, nidi, uova e accumuli di molti scheletri. Il materiale della formazione Two Medicine ha reso celebre Maiasaura e la discussione sulle modalità della cura parentale. La presenza di nidi e giovani nelle colonie testimonia una riproduzione strutturata nello spazio; il grado preciso e la durata delle cure alimentari rimangono inferenze da valutare con attenzione.
I grandi accumuli ossei possono suggerire comportamenti gregari, ma un deposito fossile non è una fotografia istantanea. Più animali possono essere morti nello stesso evento, oppure i resti possono essersi accumulati in tempi differenti. Per argomentare un’ipotesi di vita sociale occorre combinare distribuzione delle età, tafonomia, orientazione dei corpi, sedimentologia e confronto con altri siti.
Lo studio istologico delle ossa permette di stimare velocità di crescita e fasi di sviluppo, con limiti legati alla conservazione e alla variabilità individuale. Le modificazioni ontogenetiche di cranio, creste e proporzioni corporee rendono indispensabile verificare l’età relativa degli esemplari prima di introdurre nuove specie.
Metodo paleontologico e controversie
Una scheda tassonomica rigorosa non può limitarsi alla citazione del nome scientifico: deve chiarire quale materiale viene utilizzato, chi abbia descritto il taxon e quali caratteri permettano di distinguerlo dai suoi parenti. Nei casi più complessi la diagnosi originaria è stata modificata, il materiale tipo è incompleto o alcune attribuzioni sono state contestate. Per questo le formule “specie valida” e “sinonimo” rappresentano lo stato delle evidenze disponibili, non verità immutabili.
Il genere Hadrosaurus illustra le difficoltà delle classificazioni basate su materiale incompleto; altri esempi coinvolgono i confini tra alcune specie di Edmontosaurus e le attribuzioni storiche a Iguanodon. Anche termini divulgativi come “dinosauro dal becco d’anatra” non corrispondono sempre a un rango tassonomico formalmente definito.
Per confrontare le fonti, è preferibile partire dalle diagnosi originali e dalle revisioni sottoposte a revisione scientifica, utilizzando i repertori museali per il contesto. Le ricostruzioni vanno interpretate alla luce delle incertezze e degli aggiornamenti tassonomici.
Atlante ragionato delle specie
Le schede seguenti sono un repertorio selezionato e non esaustivo. Il raggruppamento è orientativo e non sostituisce la ricostruzione filogenetica di dettaglio. Ogni voce include il valore informativo del taxon e i limiti più importanti dell’interpretazione.
Dryosaurus altus
Inquadramento: Ornitopode giurassico | Giurassico superiore · Nord America
Forma erbivora relativamente piccola, con arti posteriori adatti alla locomozione bipede. Importante per confrontare l’anatomia degli ornitopodi antecedenti alla grande radiazione degli iguanodonti.
Dysalotosaurus lettowvorbecki
Inquadramento: Ornitopode giurassico | Giurassico superiore · Tanzania
Conosciuto da numerosi resti della formazione Tendaguru; offre informazioni rilevanti sulla crescita e sulla variabilità individuale nei piccoli ornitopodi.
Camptosaurus dispar
Inquadramento: Iguanodontia basale | Giurassico superiore · Nord America
Un iguanodontiano relativamente precoce che permette di esaminare la transizione nelle proporzioni corporee e nei meccanismi alimentari.
Uteodon aphanoecetes
Inquadramento: Iguanodontia | Giurassico superiore · Nord America
Taxon utile nel confronto con altri iguanodontiani giurassici; le relazioni sistematiche e la distinzione da forme affini richiedono attenzione alle revisioni.
Iguanodon bernissartensis
Inquadramento: Iguanodontia | Cretaceo inferiore · Europa
Uno dei dinosauri meglio conosciuti per il materiale di Bernissart. Il pollice robusto e la locomozione facoltativamente quadrupede ne fanno un caso essenziale di anatomia funzionale.
Mantellisaurus atherfieldensis
Inquadramento: Iguanodontia | Cretaceo inferiore · Europa
In passato classificato fra le specie di Iguanodon, oggi comunemente riconosciuto come genere distinto. Mostra perché le revisioni tassonomiche cambino gli elenchi di specie.
Ouranosaurus nigeriensis
Inquadramento: Iguanodontia | Cretaceo inferiore · Niger
Iguanodontiano africano caratterizzato da spine neurali allungate. La funzione dell’alta struttura dorsale resta discussa e non può essere definita con certezza una vela termoregolatrice.
Lurdusaurus arenatus
Inquadramento: Iguanodontia | Cretaceo inferiore · Niger
Animale robusto e massiccio che illustra la diversità morfologica raggiunta dagli iguanodontiani del Cretaceo africano.
Muttaburrasaurus langdoni
Inquadramento: Iguanodontia | Cretaceo inferiore · Australia
Grande ornitopode australiano noto per il cranio particolare; la collocazione filogenetica va verificata rispetto ai differenti studi.
Tenontosaurus tilletti
Inquadramento: Iguanodontia | Cretaceo inferiore · Nord America
Ornitischio erbivoro con lunga coda e proporzioni distintive. La sua posizione relativa rispetto agli iguanodontiani derivati è oggetto di analisi sistematiche.
Tenontosaurus dossi
Inquadramento: Iguanodontia | Cretaceo inferiore · Nord America
Seconda specie generalmente attribuita a Tenontosaurus, utile per discutere le variazioni tra specie affini e l’identificazione diagnostica.
Rhabdodon priscus
Inquadramento: Rhabdodontomorpha | Cretaceo superiore · Europa
Erbivoro europeo dal significato biogeografico rilevante; la composizione e collocazione dei rhabdodontomorfi è stata rivalutata in analisi recenti.
Zalmoxes robustus
Inquadramento: Ornithischia, posizione discussa | Cretaceo superiore · Romania
Taxon dei bacini insulari europei, storicamente collocato fra i rabdodontidi. Il riesame del 2026 ne lascia incerta la posizione tra ceratopsi e iguanodonti.
Ferenceratops shqiperorum: una riclassificazione
Inquadramento: Ceratopsia | Cretaceo superiore · Romania
La specie un tempo chiamata Zalmoxes shqiperorum è stata riassegnata nel 2026 al genere Ferenceratops e interpretata come ceratopsio. Questo caso chiarisce perché non tutti gli erbivori europei storicamente inclusi fra gli ornitopodi appartengano effettivamente a quel gruppo.
Ajkaceratops kozmai e il nome Mochlodon vorosi
Inquadramento: Ceratopsia | Cretaceo superiore · Ungheria
Una revisione del 2026 interpreta Mochlodon vorosi come sinonimo più recente di Ajkaceratops kozmai. I due nomi non vengono quindi considerati qui specie indipendenti; la nuova attribuzione modifica il quadro degli erbivori europei.
Eolambia caroljonesa
Inquadramento: Hadrosauroidea | Cretaceo superiore, Cenomaniano inferiore · Nord America
Adrosauroide iniziale che contribuisce allo studio dell’origine dei caratteri del muso e della dentatura dei gruppi derivati.
Probactrosaurus gobiensis
Inquadramento: Hadrosauroidea | Cretaceo inferiore · Cina
Adrosauroide asiatico spesso impiegato negli studi comparativi sullo sviluppo dei complessi dentari.
Bactrosaurus johnsoni
Inquadramento: Hadrosauroidea | Cretaceo superiore · Asia
Taxon asiatico importante per l’analisi delle trasformazioni craniche all’interno di Hadrosauroidea.
Gilmoreosaurus mongoliensis
Inquadramento: Hadrosauroidea | Cretaceo superiore · Mongolia/Cina
Documenta la diversità di forme asiatiche nelle vicinanze del ramo degli adrosauridi derivati.
Hadrosaurus foulkii
Inquadramento: Hadrosauridae / incerta posizione interna | Cretaceo superiore · Nord America
Nome storicamente centrale nella paleontologia nordamericana. La natura relativamente incompleta dello scheletro rende delicate le comparazioni tassonomiche.
Edmontosaurus annectens
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Grande erbivoro con abbondanti fossili; significativo per lo studio del cranio, dell’involucro cutaneo e dello sviluppo individuale.
Edmontosaurus regalis
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Specie distinta di Edmontosaurus; le differenze anatomiche permettono importanti confronti fra faune di età diverse.
Shantungosaurus giganteus
Inquadramento: Saurolophinae | Cretaceo superiore · Cina
Fra gli adrosauridi di dimensioni maggiori; le stime di massa richiedono cautela perché cambiano in base al metodo ricostruttivo.
Gryposaurus notabilis
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Hadrosauride con profilo nasale arcuato; la morfologia del muso è utile per riconoscere il gruppo.
Gryposaurus monumentensis
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Specie distinta che documenta la diversità anatomica dei gryposauri nelle faune cretacee.
Saurolophus osborni
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Dinosauro con cresta cranica solida, da non confondere con le complesse creste cave dei lambeosaurini.
Saurolophus angustirostris
Inquadramento: Saurolophinae | Cretaceo superiore · Mongolia
Grande saurolofino asiatico che aiuta a ricostruire affinità e dispersioni tra continenti.
Prosaurolophus maximus
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Taxon con rilievo cranico anteriore, significativo per studiare la varietà delle strutture nasali.
Maiasaura peeblesorum
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Celebre per nidi, uova e resti di giovani; è un riferimento essenziale per discutere riproduzione e crescita senza dedurne automaticamente ogni forma di cura parentale.
Brachylophosaurus canadensis
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Dotato di cresta cranica appiattita; diversi fossili ben conservati rendono possibile discutere anatomia e tessuti esterni.
Kritosaurus navajovius
Inquadramento: Saurolophinae | Cretaceo superiore · Nord America
Nome con una complessa storia tassonomica, esemplare per spiegare i problemi diagnostici quando il materiale è incompleto.
Lambeosaurus lambei
Inquadramento: Lambeosaurinae | Cretaceo superiore · Nord America
Hadrosauride con cresta cava elaborata; ricostruzioni e attribuzioni si sono modificate in seguito a confronti ontogenetici.
Corythosaurus casuarius
Inquadramento: Lambeosaurinae | Cretaceo superiore · Nord America
La cresta cranica alta ha contribuito agli studi su riconoscimento visivo e possibili segnali acustici.
Hypacrosaurus altispinus
Inquadramento: Lambeosaurinae | Cretaceo superiore · Nord America
Lambeosaurino importante per il confronto anatomico delle creste e delle proporzioni corporee.
Hypacrosaurus stebingeri
Inquadramento: Lambeosaurinae | Cretaceo superiore · Nord America
Il materiale di crescita e nidificazione sostiene studi sull’ontogenesi degli adrosauridi.
Parasaurolophus walkeri
Inquadramento: Lambeosaurinae | Cretaceo superiore · Canada
La lunga cresta con passaggi nasali interni è centrale nei modelli di risonanza acustica; il suono reale rimane sconosciuto.
Parasaurolophus tubicen
Inquadramento: Lambeosaurinae | Cretaceo superiore · Nord America
Specie con una struttura cranica riconoscibile, fondamentale per confrontare la varietà delle creste del genere.
Parasaurolophus cyrtocristatus
Inquadramento: Lambeosaurinae | Cretaceo superiore · Nord America
Conosciuto per una cresta relativamente più corta e incurvata; l’interpretazione deve tenere conto di crescita e variabilità.
Tsintaosaurus spinorhinus
Inquadramento: Lambeosaurinae | Cretaceo superiore · Cina
Lambeosaurino asiatico dalla ricostruzione storicamente mutevole della cresta, che esemplifica l’impatto dei nuovi fossili.
Olorotitan arharensis
Inquadramento: Lambeosaurinae | Cretaceo superiore · Russia
Lambeosaurino dell’Estremo Oriente russo con anatomia notevole del capo e del tronco.
Amurosaurus riabinini
Inquadramento: Lambeosaurinae | Cretaceo superiore · Russia
Documenta l’importante radiazione asiatica degli adrosauridi nel Cretaceo superiore.
Charonosaurus jiayinensis
Inquadramento: Lambeosaurinae | Cretaceo superiore · Cina
Strettamente imparentato con i parasaurolofini; l’affinità non dimostra automaticamente sinonimia con Parasaurolophus.
Magnapaulia laticaudus
Inquadramento: Lambeosaurinae | Cretaceo superiore · Messico
Hadrosauride di grandi dimensioni, rappresentativo della diversità delle faune meridionali nordamericane.
Velafrons coahuilensis
Inquadramento: Lambeosaurinae | Cretaceo superiore · Messico
Lambeosaurino messicano utile per ricostruire biogeografia e diversificazione regionale.
Arenysaurus ardevoli
Inquadramento: Lambeosaurinae | Cretaceo superiore · Spagna
Adrosauride europeo importante per lo studio degli ecosistemi insulari del Cretaceo finale.
Blasisaurus canudoi
Inquadramento: Lambeosaurinae | Cretaceo superiore · Spagna
Specie europea che integra le conoscenze sugli adrosauridi dei Pirenei.
Tethyshadros insularis
Inquadramento: Hadrosauroidea | Cretaceo superiore · Italia
Ritrovato nell’area di Trieste; la sua anatomia è essenziale nella discussione delle faune europee e dell’evoluzione insulare.
Telmatosaurus transsylvanicus
Inquadramento: Hadrosauroidea | Cretaceo superiore · Romania
Adrosauroide europeo della regione di Hațeg, importante nella ricostruzione biogeografica.
Eotrachodon orientalis
Inquadramento: Hadrosauridae | Cretaceo superiore · Nord America
Fornisce elementi chiave per discutere le prime diramazioni della storia degli adrosauridi.
Tavole comparative e glossario
| Gruppo | Caratteri generali | Esempi |
|---|---|---|
| Ornitopodi giurassici | Taglia spesso contenuta, posteriori sviluppati | Dryosaurus, Dysalotosaurus |
| Iguanodontia | Aumento di varietà nelle mani, nella dentatura e nelle dimensioni | Iguanodon, Mantellisaurus |
| Hadrosauroidea | Trasformazioni del muso e delle file dentarie | Eolambia, Probactrosaurus |
| Saurolophinae | Diversificazione delle forme nasali | Edmontosaurus, Saurolophus |
| Lambeosaurinae | Frequenti creste craniche complesse | Corythosaurus, Parasaurolophus |