
Un viaggio dalle origini triassiche ai dinosauri viventi: gli uccelli. Anatomia, ambienti e fossili permettono di ricostruire una storia lunga oltre duecento milioni di anni, popolata da animali molto diversi per dimensioni, alimentazione e comportamento.
Le illustrazioni sono ricostruzioni paleoartistiche realizzate con intelligenza artificiale. Didascalie e testo distinguono i caratteri documentati dai fossili dalle ipotesi su colori, tessuti molli e ambientazione.
10. Evoluzione, origine degli uccelli ed estinzione
Che cosa significa evoluzione nei dinosauri
L’evoluzione biologica è la variazione ereditaria nelle popolazioni attraverso le generazioni, non una marcia prestabilita verso organismi “superiori”. Nel Mesozoico i dinosauri diversificarono dimensioni, dentizioni, modalità locomotorie e strategie ecologiche. Alcune innovazioni comparvero più volte in linee non strettamente imparentate, perché problemi analoghi possono favorire risposte anatomiche simili.
Un albero filogenetico è una ricostruzione delle relazioni genealogiche basata su caratteri condivisi derivati e, sempre più spesso, su modelli quantitativi. I nodi rappresentano antenati comuni ipotizzati, non necessariamente specie fossili già note. Per questo non è corretto rappresentare tutte le specie in un’unica catena lineare che culmina negli uccelli moderni.
I fossili forniscono campioni incompleti dell’evoluzione: un fossile più antico non è automaticamente l’antenato diretto di uno più recente. La diagnosi di una specie dipende da caratteri conservati, comparazioni e decisioni tassonomiche rivedibili. Quando un ritrovamento modifica la matrice dei caratteri o la sua interpretazione, anche la posizione nell’albero può cambiare.
Dinosauri, teropodi e uccelli: la parentela
Gli uccelli appartengono ai dinosauri teropodi e, in senso cladistico, non sono un gruppo esterno ad essi. La distinzione d’uso fra “dinosauri non aviani” e “dinosauri aviani” serve a discutere l’estinzione della maggior parte delle linee a fine Cretaceo, senza affermare erroneamente che tutti i dinosauri siano scomparsi.
La parentela è sostenuta da un insieme di caratteri scheletrici, dai fossili con piume e dalla progressiva comparsa di strutture associate al movimento alare e alla ventilazione respiratoria. Nessun singolo carattere isolato, ad esempio la presenza di piume, esaurisce la dimostrazione: è la concordanza di molte osservazioni indipendenti a rendere robusta la ricostruzione.
Dromaeosauridi e troodontidi sono linee particolarmente importanti per capire le transizioni paraviane; le loro esatte relazioni reciproche possono dipendere dal campionamento e dai caratteri codificati. Si deve distinguere fra caratteri primitivi condivisi e caratteristiche proprie delle linee aviane derivate.
Dalla squama alla piuma: origine e funzioni
Le piume sono strutture epidermiche complesse con differenti architetture. Il registro fossile mostra rivestimenti filamentosi e piume pennacee in teropodi non necessariamente volatori. La loro origine precede dunque la comparsa del volo battuto come lo conosciamo negli uccelli viventi. Non è corretto pensare che ogni dinosauro piumato fosse capace di volare.
Le prime funzioni delle strutture piumose sono indagate con ipotesi che riguardano isolamento, display visivo, riconoscimento, incubazione e protezione. In seguito alcune tipologie di penne divennero superfici aerodinamiche efficienti. Le caratteristiche attuali possono essere state cooptate da funzioni differenti: un esempio di exaptation, cioè l’acquisizione di un nuovo ruolo per una struttura precedentemente esistente.
Impronte cutanee e pigmenti preservati sono osservazioni preziose, ma non consentono sempre ricostruzioni cromatiche complete. L’assenza di piume in un reperto non dimostra la loro assenza in tutta la specie: la conservazione dei tessuti molli richiede condizioni eccezionali.
Scheletro, polso e trasformazione dell’arto anteriore
L’arto anteriore dei teropodi possedeva già un complesso di ossa e articolazioni capace di notevole mobilità. Attraverso la storia evolutiva delle linee prossime agli uccelli si osservano trasformazioni di spalla, gomito, polso, mano e cintura pettorale che influenzarono postura e cinetica dell’ala.
Una ricerca del 2025 su materiale della Mongolia ha reinterpretato la storia delle ossa carpali: la sostituzione topologica dell’ulnare con il pisiforme avrebbe preceduto gli uccelli propriamente detti e interessato un ventaglio più ampio di teropodi pennaraptori. Il risultato invita a evitare l’idea che ogni elemento dell’apparato del volo sia nato contemporaneamente alla capacità di volare.
Le strutture scheletriche, da sole, non provano potenza muscolare, frequenza del battito o prestazioni di un animale estinto. Le deduzioni funzionali diventano più affidabili se integrate con proporzioni ossee, tracce di inserzioni muscolari, piumaggio preservato e modelli biomeccanici.
Archaeopteryx e il mosaico evolutivo
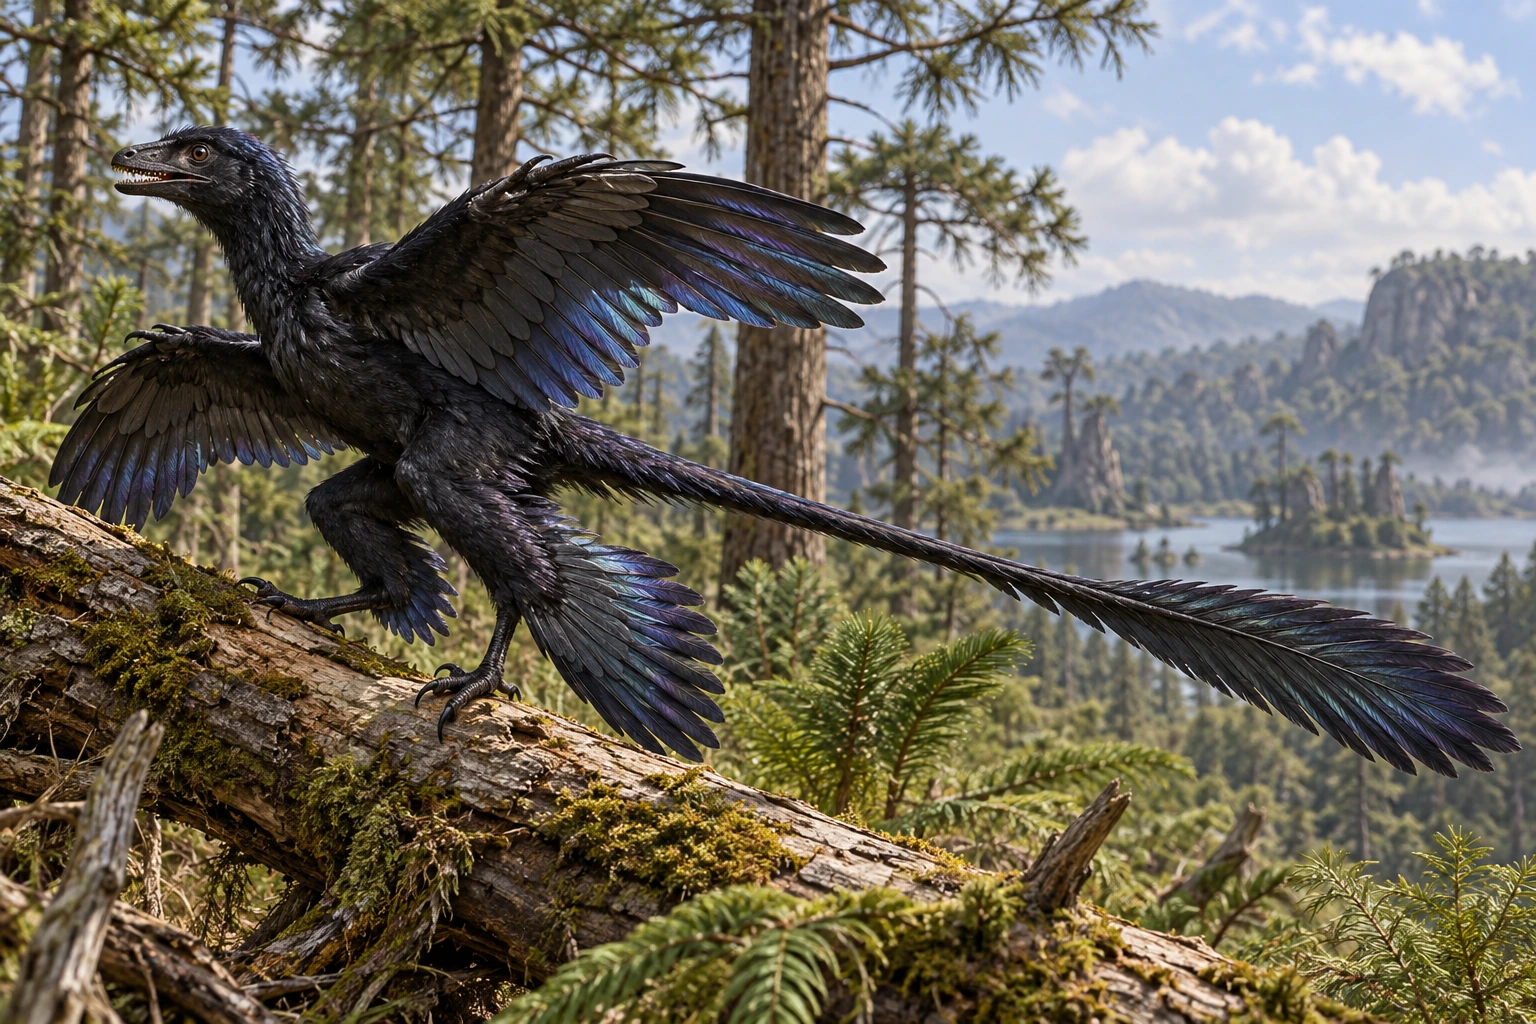
Archaeopteryx visse nel Giurassico superiore, circa 150 milioni di anni fa, nell’area dell’attuale Germania meridionale. È celebre perché associa piume e ali a denti, dita con artigli e lunga coda ossea. Non costituisce il “primo uccello” in senso necessariamente univoco: il suo ruolo e la posizione di altri avialani antichi sono studiati attraverso confronti filogenetici.
Il quattordicesimo esemplare, noto come Chicago Archaeopteryx, descritto nel 2025, conserva dettagli dello scheletro e del piumaggio. Fra questi figurano penne terziarie interne all’ala che contribuiscono a una superficie aerodinamica continua. Anche la struttura del palato, la colonna vertebrale e le tracce di tessuti del piede forniscono indizi sulla combinazione di tratti primitivi e derivati.
È scorretto attribuire ad Archaeopteryx le capacità di un uccello contemporaneo senza qualificazioni. Le analisi anatomiche sostengono la presenza di adattamenti legati al volo, ma la ricostruzione precisa del suo stile locomotorio, dalla manovrabilità alla frequenza d’impiego del battito, richiede inferenze.

Altre linee aviane mesozoiche
Gli avialani del Mesozoico non formavano una progressione semplice da Archaeopteryx a un uccello moderno. Il record fossile documenta ramificazioni, molte delle quali terminarono prima o durante la crisi di fine Cretaceo. Alcune linee svilupparono code accorciate, sterni più elaborati e apparati di volo specializzati con combinazioni non identiche a quelle dei neorniti.
Gli enantiorniti furono diversificati nel Cretaceo e presentavano particolarità dell’articolazione della cintura pettorale. Ornithuromorpha include linee più vicine agli uccelli attuali e forme adattate ad ambienti costieri o acquatici. La loro notevole varietà anatomica testimonia che il volo e la locomozione terrestre o acquatica ebbero differenti soluzioni funzionali.
Quando si parla di “uccelli primitivi”, il termine non deve suggerire organismi imperfetti o inferiori. Ogni specie fossile era adattata al proprio ambiente e possedeva una combinazione di caratteri acquisiti lungo il proprio ramo evolutivo.
Come può essersi originato il volo
Le tradizionali ipotesi “dagli alberi verso il basso” e “dal terreno verso l’alto” hanno offerto scenari alternativi per l’origine del volo. Nessuna di esse dovrebbe essere presentata come una ricostruzione fotografica di eventi osservati. Le scoperte di piccoli teropodi piumati e gli studi sulle fasi iniziali dell’aerodinamica hanno complicato la contrapposizione binaria.
La presenza di superfici piumate può inizialmente avere favorito equilibrio, controllo dei salti, frenata, stabilità o display, prima di permettere volo sostenuto in alcune linee. Il rapporto tra planata, battito assistito e decollo autonomo potrebbe non essere ricostruibile con una sola sequenza comune a tutti i pennaraptori.
Un criterio essenziale è separare ciò che un fossile dimostra (ad esempio la geometria di una penna o la presenza di un’articolazione) da ciò che una simulazione suggerisce sulle prestazioni. Il confronto con gli uccelli viventi è utile ma non elimina i margini di incertezza.
La Terra alla fine del Cretaceo
Negli ultimi milioni di anni del Cretaceo la Terra aveva mari epicontinentali, continenti in posizioni diverse dalle attuali e climi globalmente più caldi di quelli odierni. Faune regionali differenti ospitavano grandi teropodi, adrosauri, ceratopsi, titanosauri e numerosi altri vertebrati. Non esisteva un unico ecosistema mondiale dei dinosauri.
Il passaggio fra Cretaceo e Paleogene è datato a circa 66 milioni di anni fa. Il confine stratigrafico K–Pg è riconoscibile in molte successioni geologiche attraverso segnali geochimici e paleontologici, benché la completezza dei sedimenti vari considerevolmente da luogo a luogo.
Per stabilire se un gruppo fosse già in declino prima dell’impatto è necessario considerare lacune di campionamento, differenze fra regioni e metodi statistici. Curve di diversità costruite solo da numero di fossili raccolti possono confondere storia biologica e intensità della ricerca.
Chicxulub: evidenze di un impatto globale
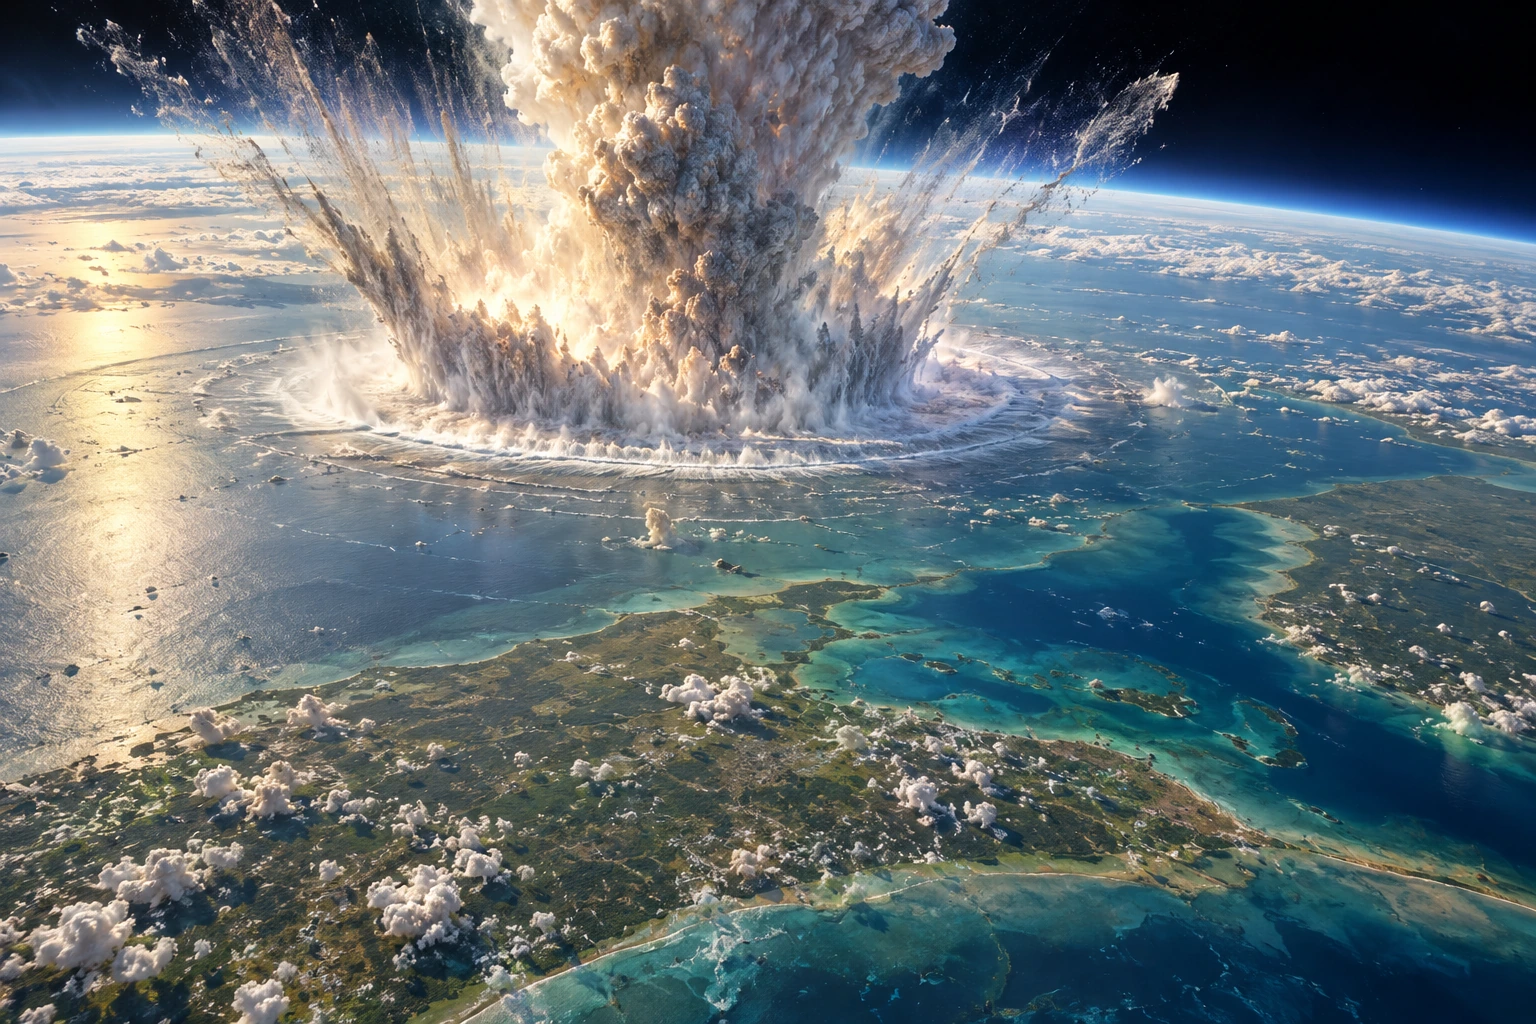
Una struttura da impatto di grandi dimensioni si trova nella penisola dello Yucatán, in Messico. L’impatto di un corpo extraterrestre circa 66 milioni di anni fa è sostenuto dalla struttura del cratere, dalle evidenze mineralogiche di shock e da anomalie geochimiche presenti nei depositi di confine. L’associazione temporale con l’estinzione K–Pg è uno dei risultati più solidi della geologia moderna.
Strati arricchiti in iridio, quarzo scioccato e materiali espulsi dall’impatto sono indizi indipendenti, da interpretare nel loro contesto stratigrafico. L’energia liberata non va tradotta meccanicamente in una sola conseguenza: il sistema Terra rispose attraverso fenomeni simultanei e processi che agirono su scale temporali differenti.
L’affermazione che un impatto abbia innescato la grande crisi non significa che ogni morte sia derivata direttamente dall’onda d’urto o dallo tsunami. Nelle regioni distanti furono determinanti alterazioni climatiche e catene alimentari.
Dall’impatto all’inverno da impatto
L’iniezione nell’atmosfera di polveri, aerosol e fuliggine può ridurre la radiazione solare incidente e alterare la temperatura superficiale. Modelli fisici collegano la diminuzione della luce a una forte compromissione della fotosintesi e, di conseguenza, della produzione primaria su cui dipendono reti alimentari terrestri e marine.
La quantità relativa di polveri silicatiche, solfati e particelle carboniose resta un parametro di ricerca. Nel gennaio 2025 uno studio su campioni dell’evento K–Pg ha stimato circa 67 ± 39 gigatonnellate di zolfo liberato, un valore inferiore ad alcune stime modellistiche precedenti. Il risultato ridimensiona in quella ricostruzione il possibile ruolo specifico dello zolfo, non nega l’impatto né dimostra la debolezza dell’intera perturbazione climatica.
Per valutare la gravità dell’inverno da impatto servono modelli di circolazione atmosferica e oceani, ricostruzioni delle emissioni e dati sedimentari. Le simulazioni producono intervalli di possibilità, non misurazioni dirette della temperatura giornaliera del pianeta 66 milioni di anni fa.
Deccan e concause ambientali
Nel tardo Cretaceo si verificarono importanti eruzioni basaltiche nell’India attuale, associate alla provincia vulcanica dei Trappi del Deccan. L’immissione di gas e aerosol può influenzare clima e chimica oceanica, con effetti variabili in intensità e durata. Il problema scientifico è stabilire cronologia, volume delle emissioni e relazione quantitativa con l’impatto.
L’esistenza delle eruzioni non implica automaticamente che esse abbiano causato da sole l’estinzione dei dinosauri non aviani. Allo stesso modo, riconoscere Chicxulub come principale fattore scatenante non rende irrilevanti condizioni ambientali preesistenti. I due fenomeni possono essere considerati in modelli che distinguono cause immediate, condizioni di vulnerabilità ed effetti di lungo periodo.
La verifica richiede datazioni ad alta precisione, segnali isotopici, modelli di degassamento e comparazioni geografiche. Non tutte le evidenze possiedono lo stesso grado di risoluzione temporale.
Estinzione selettiva e sopravvivenza degli uccelli
Alla fine del Cretaceo scomparvero le linee dei dinosauri non aviani e numerosi gruppi di uccelli mesozoici, mentre il ramo che comprende gli uccelli attuali sopravvisse. Questo è il motivo per cui la frase “i dinosauri si sono estinti” è imprecisa dal punto di vista evolutivo.
Le ragioni della sopravvivenza di alcune linee aviane sono studiate attraverso caratteristiche dietetiche, dimensioni corporee, distribuzione degli habitat e possibilità di resistere al crollo della produttività primaria. Per esempio, la disponibilità di alimenti meno direttamente dipendenti dalle piante verdi potrebbe aver creato vantaggi per alcune popolazioni; non deve però essere elevata a spiegazione unica e provata per tutte le linee.
Le estinzioni sono selettive: specie diverse reagiscono diversamente alla stessa perturbazione. La storia evolutiva comprende sia la perdita di rami filogenetici sia l’espansione dei sopravvissuti nei successivi ecosistemi paleogenici.
Ricostruire una crisi: limiti e metodi
Le estinzioni di massa si studiano combinando stratigrafia, paleontologia, geochimica, geocronologia e modelli climatici. Ogni disciplina osserva finestre parziali: un fossile testimonia la presenza di un organismo, mentre la sua assenza in una formazione può dipendere dalla mancata deposizione, erosione o ricerca.
Un errore comune è confondere l’ultima occorrenza fossile con il vero momento di estinzione. Poiché la fossilizzazione è rara, l’ultimo fossile noto di una specie tende spesso a essere più antico della sua ultima popolazione effettiva. Le analisi devono quindi usare intervalli temporali e correzioni per la qualità del campionamento.
Le cronologie di impatto, vulcanismo e variazioni ecologiche devono essere confrontate tenendo conto delle incertezze delle datazioni. Senza questa attenzione si possono attribuire rapporti causa-effetto a eventi semplicemente vicini nel tempo.
Dopo il confine K–Pg: la radiazione degli uccelli
Nel Paleogene le linee superstiti degli uccelli si diversificarono occupando habitat e nicchie ecologiche lasciati liberi o trasformati dalla crisi. Questo processo viene spesso chiamato radiazione evolutiva: aumento e differenziazione di linee genealogiche attraverso il tempo, non esplosione istantanea di tutte le specie moderne.
La filogenetica molecolare degli uccelli attuali e il registro fossile sono fonti complementari ma non equivalenti. I dati genetici consentono di stimare divergenze fra rami viventi; i fossili forniscono età minime per la presenza di caratteri o gruppi. Le differenze fra stime possono derivare da calibrazioni e modelli.
Gli uccelli odierni sono quindi l’esito di una lunga storia dinosauriana. Piccioni, passeri, rapaci e pinguini discendono da linee che attraversarono, in modo diverso, la trasformazione degli ecosistemi successiva a Chicxulub.
Casi di studio, cronologia e confronto
Caso 1: Archaeopteryx. Le piume delle ali osservabili, insieme ad altre strutture anatomiche, sostengono un collegamento funzionale al volo; resta necessario distinguere capacità aerodinamiche e comportamento effettivamente praticato in vita. Il reperto studiato nel 2025 illustra la capacità di una nuova preparazione di modificare conoscenze su una specie già celebre.
Caso 2: Polso dei pennaraptori. Un’innovazione di natura scheletrica, identificata anche in gruppi non aviani, dimostra che la storia degli adattamenti al volo non coincide esattamente con la comparsa degli uccelli. La ricostruzione evolutiva sfrutta un ampio confronto di ossa omologhe.
Caso 3: Zolfo di Chicxulub. La stima delle emissioni atmosferiche non è una costante immutabile: nuove misure geochimiche possono cambiare i parametri di simulazioni climatiche. La robustezza del quadro generale dell’impatto non dipende da un unico parametro quantitativo.
Caso 4: Gli ultimi fossili. La scomparsa di un taxon da una successione geologica locale non equivale necessariamente alla sua estinzione globale. Servono confronti con aree indipendenti, datazioni e una valutazione del campionamento.
Cronologia essenziale
| Periodo indicativo | Evento / evidenza |
|---|---|
| ~230 milioni di anni fa | Prime fasi dell’evoluzione dei dinosauri nel Triassico |
| ~150 milioni di anni fa | Archaeopteryx nel Giurassico superiore |
| Cretaceo | Diversificazione degli uccelli mesozoici e di molti teropodi piumati |
| ~66 milioni di anni fa | Impatto di Chicxulub e crisi del confine K–Pg |
| Paleogene | Diversificazione delle linee superstiti di uccelli |
Errori da evitare
«Tutti i dinosauri sono estinti»: falso in senso filogenetico, perché gli uccelli sono dinosauri viventi.
«Le piume sono nate per volare»: non dimostrato; strutture piumose precedono il volo e possono avere avuto funzioni diverse.
«Archaeopteryx era l’antenato diretto di tutti gli uccelli moderni»: la sua parentela stretta non dimostra un rapporto diretto di antenato-discendente.
«Il vulcanismo dei Deccan non è mai esistito / ha certamente causato da solo la crisi»: entrambe formulazioni scorrette.
«Il nuovo studio sullo zolfo smentisce Chicxulub»: scorretto; revisiona un parametro, non l’evidenza dell’impatto.