
Un viaggio dalle origini triassiche ai dinosauri viventi: gli uccelli. Anatomia, ambienti e fossili permettono di ricostruire una storia lunga oltre duecento milioni di anni, popolata da animali molto diversi per dimensioni, alimentazione e comportamento.
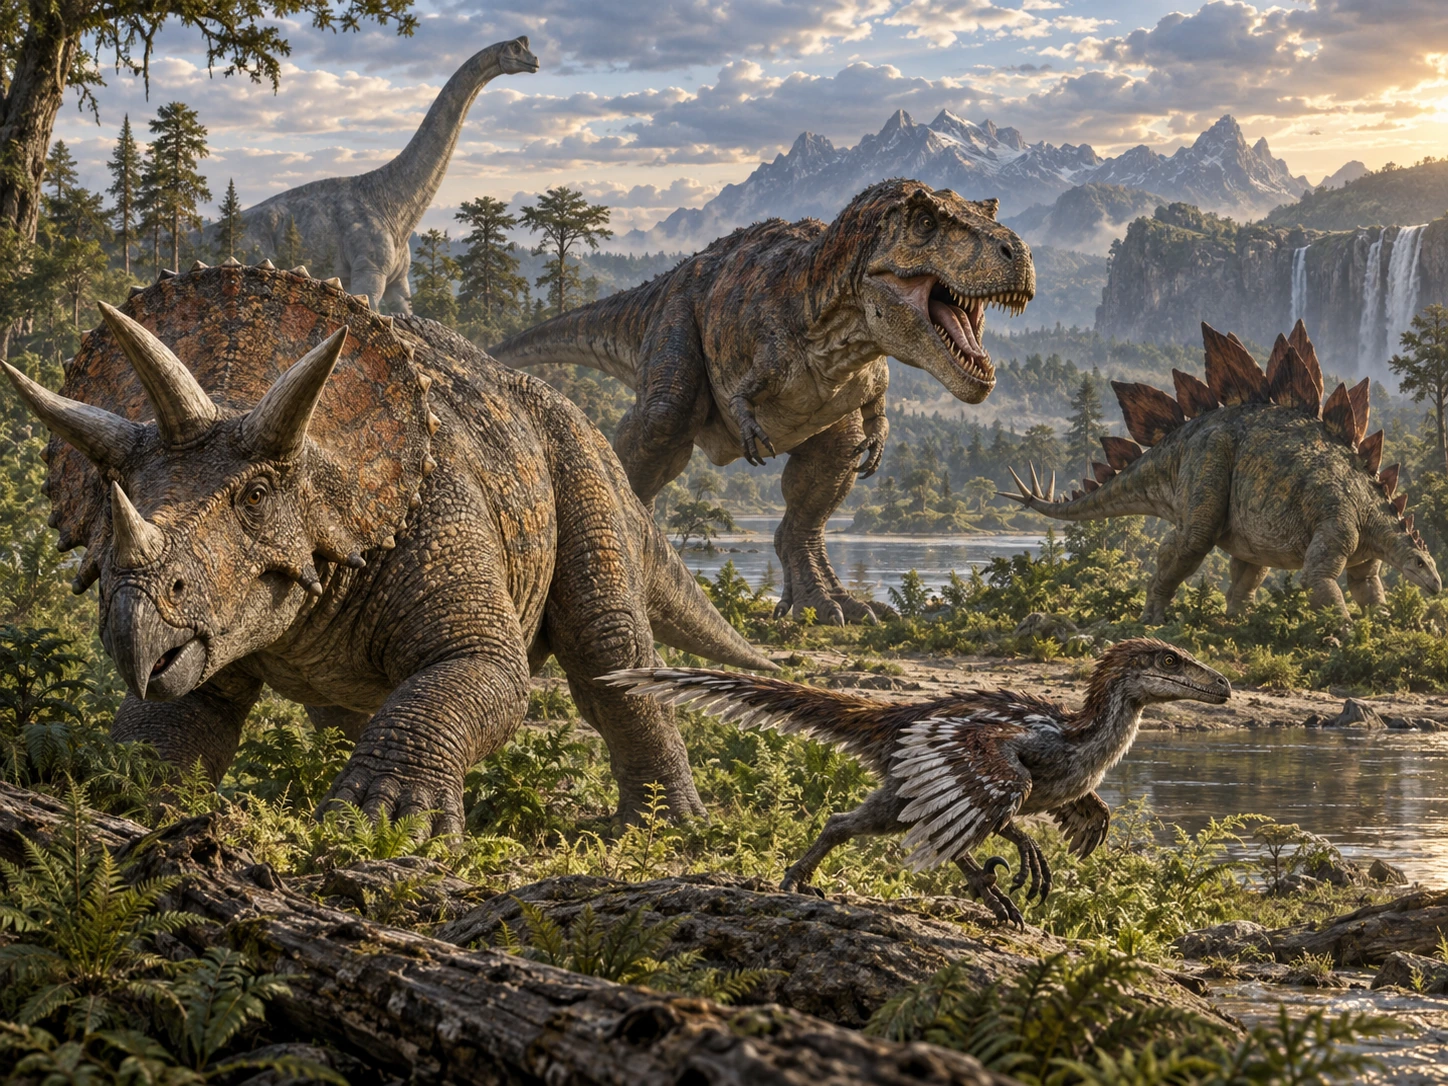
Le illustrazioni sono ricostruzioni paleoartistiche realizzate con intelligenza artificiale. Didascalie e testo distinguono i caratteri documentati dai fossili dalle ipotesi su colori, tessuti molli e ambientazione.
1. Fondamenti, tempo geologico e atlante introduttivo
Che cosa sono i dinosauri
La parola dinosauro non indica qualunque grande rettile del passato. Designa un gruppo evolutivo, Dinosauria, riconosciuto attraverso una storia di discendenza comune e caratteristiche dello scheletro. I dinosauri appartengono agli arcosauri, il grande raggruppamento che include anche coccodrilli, uccelli e numerosi gruppi fossili. Parlare correttamente di dinosauri significa dunque combinare anatomia, storia evolutiva e parentela, evitando definizioni basate soltanto su grandezza, ferocia o antichità.
Una delle caratteristiche generalmente associate ai dinosauri è la disposizione degli arti posteriori sotto il corpo, anziché lateralmente come accade in molte lucertole. Non si tratta però di una singola caratteristica sufficiente a identificare ogni fossile. I paleontologi esaminano insiemi di caratteri delle ossa del bacino, delle vertebre, del cranio e degli arti per valutare l’appartenenza a un gruppo e le relazioni con gli altri arcosauri.
Pterosauri, ittiosauri, plesiosauri e mosasauri non appartengono a Dinosauria: sono linee evolutive differenti. Gli uccelli, al contrario, sono dinosauri viventi perché discendono dall’interno dei teropodi. Per questo l’affermazione secondo cui tutti i dinosauri sono scomparsi 66 milioni di anni fa è errata; si estinsero i dinosauri non aviani, mentre una linea aviana sopravvisse.
La Terra e la scala dei tempi geologici
I dinosauri non vissero tutti nello stesso periodo. La loro storia occupa gran parte del Mesozoico, un’era compresa approssimativamente tra 252 e 66 milioni di anni fa e suddivisa in Triassico, Giurassico e Cretaceo. Le date esatte dei confini stratigrafici vengono periodicamente affinate: per leggere una scheda di specie, è sempre meglio indicare anche la formazione geologica e il margine d’incertezza.
Nel Triassico i continenti erano riuniti in larga misura nella Pangea; nel Giurassico e nel Cretaceo la frammentazione dei continenti, l’apertura di bacini oceanici, la variazione del livello del mare e i cambiamenti climatici trasformarono ripetutamente le distribuzioni degli animali. La presenza dello stesso gruppo in continenti oggi lontani può riflettere antiche connessioni terrestri, dispersioni o una distribuzione precedente alla separazione geografica.
Una specie del Giurassico superiore non poté incontrare un dinosauro esclusivo del Cretaceo terminale. Questa regola elementare evita numerosi errori delle illustrazioni popolari: la coesistenza di due taxa deve essere verificata su base sia cronologica sia geografica.
Datazione dei fossili e incertezza cronologica
L’età di un fossile viene normalmente attribuita attraverso il contesto stratigrafico, talvolta integrato da metodi radiometrici applicati a livelli vulcanici associati. Il metodo radiometrico misura proprietà di minerali databili, non necessariamente quelle dell’osso fossile. L’interpolazione fra due livelli datati introduce margini di incertezza e dipende dalla corretta correlazione delle successioni.
La biostratigrafia utilizza la successione di organismi caratteristici per correlare strati, mentre la magnetostratigrafia sfrutta i cambiamenti della polarità del campo magnetico terrestre. Nessuno di questi strumenti è universalmente applicabile: i depositi possono essere incompleti, deformati o difficili da correlare con precisione.
Per ogni scheda, una datazione espressa come intervallo è normalmente preferibile a un valore puntuale poco motivato. Bisogna inoltre distinguere l’intervallo di esistenza documentato dai fossili dall’effettiva durata evolutiva della specie, che può essere stata più estesa.
Origine dei dinosauri nel Triassico
I primi dinosauri inequivocabili compaiono nelle successioni del Triassico superiore, intorno a 230 milioni di anni fa. Fra i contesti cruciali figura la Formazione Ischigualasto in Argentina, che documenta una fauna comprendente dinosauri primitivi, rincosauri, cinodonti e altri arcosauri. All’inizio i dinosauri non erano i dominatori inevitabili del paesaggio: costituivano una frazione della diversità animale e condividevano l’ambiente con numerosi competitori.
Forme come Eoraptor, Eodromaeus e Herrerasaurus consentono di ricostruire i primi esperimenti evolutivi in termini di locomozione, alimentazione e anatomia. L’identità del primissimo dinosauro rimane controversa, anche perché fossili più antichi possono possedere combinazioni incomplete di caratteri. L’attribuzione di Nyasasaurus, per esempio, richiede cautela e non costituisce un punto di partenza universalmente accettato.
La crisi biologica di fine Triassico, circa 201 milioni di anni fa, eliminò diverse linee concorrenti. La successiva radiazione evolutiva dei dinosauri nel Giurassico fu quindi il prodotto di una lunga storia ecologica, non della comparsa improvvisa di animali già simili ai giganti del Cretaceo.
Il Giurassico e le nuove nicchie ecologiche
Nel Giurassico i dinosauri si diversificarono in molte forme ecologiche. Grandi sauropodi quadrupedi sfruttavano la vegetazione su ampia scala; teropodi di taglie diverse occupavano livelli predatori differenti; i primi grandi stegosauri appartenevano a comunità erbivore articolate. L’aumento della dimensione corporea in alcune linee non fu l’unico sviluppo: altre conservarono dimensioni contenute e strategie specialistiche.
La Formazione Morrison del Nord America conserva associazioni famose con Allosaurus, Stegosaurus, Diplodocus, Apatosaurus, Camarasaurus e altri dinosauri. Non ogni esemplare proviene dallo stesso intervallo né dallo stesso habitat, ma il confronto fra stratigrafia, sedimenti e anatomia consente di ipotizzare le interazioni di una vasta comunità.
La fase giurassica fu rilevante anche per le origini degli uccelli: fossili come Archaeopteryx mostrano una combinazione di piume, ali e caratteri scheletrici che aiutò a riconoscere il legame fra gli uccelli e i piccoli teropodi.
Il Cretaceo e la diversificazione
Durante il Cretaceo, ultimo periodo del Mesozoico, la frammentazione dei continenti favorì in più regioni storie evolutive differenti. In alcune aree prosperarono i titanosauri; in altre si diversificarono hadrosauri e ceratopsi; i grandi predatori compresero tirannosauroidi, abelisauridi e carcarodontosauridi, a seconda del luogo e dell’età geologica.
Le piante a fiore conobbero una grande espansione nel Cretaceo, ma non è corretto dedurre che tutti gli erbivori dipendessero prevalentemente da esse. Restarono importanti anche conifere, felci, equiseti e altre piante. Forme dentarie, tracce di usura, coproliti, contenuti intestinali eccezionalmente conservati e dati ambientali contribuiscono a ricostruire diete verosimili.
Il Cretaceo non fu un mondo uniforme. Tra circa 143 e 66 milioni di anni fa trascorsero oltre 77 milioni di anni di trasformazioni: un animale del Cretaceo inferiore poteva essere più distante nel tempo da Tyrannosaurus di quanto quest’ultimo lo sia da noi.
Scheletro, postura e locomozione
Lo scheletro di un dinosauro permette di dedurre parte dell’organizzazione corporea e del movimento. Vertebre, cinti degli arti, bacino e ossa lunghe forniscono indicazioni su postura, trasmissione dei carichi e inserzioni muscolari. Anche la presenza di cavità pneumatiche, riconducibili in alcuni gruppi a sistemi respiratori con sacchi aerei, contribuisce a interpretare la loro fisiologia.
I teropodi erano prevalentemente bipedi; sauropodi, stegosauri, anchilosauri e molti ceratopsi erano quadrupedi, mentre alcuni ornitopodi potevano muoversi in assetti differenti in base a età e comportamento. L’essere bipede non implica necessariamente rapidità e l’essere enorme non indica automaticamente lentezza: velocità e costo del trasporto richiedono modelli biomeccanici con ipotesi esplicite.
Le piste di impronte, quando ben datate e attribuite con prudenza, registrano passo, direzione, velocità stimata e talvolta presenza contemporanea di più individui. La forma di un’impronta, però, non consente sempre di arrivare alla specie: molte assegnazioni restano al livello di morfotipo o ichnotaxon.
Alimentazione, ecologia e comportamento
Le categorie carnivoro ed erbivoro descrivono una tendenza, non sempre una dieta esclusiva. Dentatura, muscolatura ricostruita, biomeccanica del morso, isotopi e confronto ecologico possono suggerire le risorse sfruttate. Per un grande teropode, la presenza di denti seghettati e di morsi sulle ossa indica consumo di carne; non decide, da sola, quanto peso avessero caccia attiva e necrofagia.
Analogamente, nei sauropodi il collo lungo ampliava la zona potenzialmente accessibile al cibo, ma le preferenze di altezza di brucatura differivano tra i gruppi. Negli hadrosauri, sofisticate batterie dentarie consentivano un’elaborazione meccanica della vegetazione; nei ceratopsi il becco robusto partecipava al taglio del materiale vegetale.
La vita in gruppo va documentata con molta prudenza. Giacimenti con individui multipli, piste parallele, nidiamenti ripetuti o distribuzioni di età possono suggerire aggregazioni, ma non dimostrano automaticamente branchi stabili, gerarchie o cure parentali complesse. Ogni proposta comportamentale va distinta in osservazione, inferenza probabile e ipotesi speculativa.
Pelle, piume, colori e metabolismo
I dinosauri non erano tutti rivestiti di squame. Impressioni cutanee dimostrano strutture squamose in molti taxa, mentre fossili eccezionali di numerosi teropodi e di alcuni ornitischi mostrano filamenti e piume. L’estensione del piumaggio non è conosciuta per ogni specie e dipende da filogenesi, età e regioni del corpo conservate.
In un numero limitato di esemplari, la conservazione di strutture microscopiche interpretate come melanosomi consente di proporre ricostruzioni parziali della pigmentazione. Questi casi non autorizzano però a scegliere con certezza i colori di qualsiasi dinosauro: una ricostruzione illustrata deve dichiarare quali elementi sono accertati e quali artistici.
La fisiologia dei dinosauri fu probabilmente variabile tra linee e taglie. Crescita ossea, proporzioni corporee, isotopi e modelli metabolici mostrano un quadro più articolato della vecchia opposizione fra rettili “a sangue freddo” e mammiferi “a sangue caldo”. Dimensioni, isolamento corporeo e condizioni ambientali interagivano nel bilancio termico.
Crescita, riproduzione e sviluppo
Le uova fossili, i nidi, gli embrioni e le serie ontogenetiche offrono una finestra sul ciclo vitale dei dinosauri. In alcuni gruppi l’associazione fra adulti, piccoli e nidi suggerisce comportamenti riproduttivi complessi. Non è tuttavia possibile generalizzare tutte le osservazioni a Dinosauria: specie diverse potevano avere ritmi di crescita, dimensioni di covata e strategie di cura differenti.
La microstruttura delle ossa può rivelare la velocità relativa di crescita e i periodi di rallentamento, ma la corrispondenza tra anelli ossei e anni di vita richiede valutazioni specifiche. Ricostruire l’età di un individuo significa integrare istologia, dimensioni, fusione delle ossa e confronto con altri esemplari.
Un giovane dinosauro poteva apparire molto diverso da un adulto per proporzioni del cranio, lunghezza degli arti e sviluppo di strutture ornamentali. Tali cambiamenti spiegano perché alcuni nomi storici siano stati proposti come specie distinte e poi riesaminati come possibili stadi di crescita; le sinonimie devono sempre dipendere da dati e analisi pubblicate.
Fossilizzazione e metodi paleontologici
La fossilizzazione è un evento selettivo: solo una parte degli organismi morti viene sepolta rapidamente e conserva strutture identificabili. Il tipo di sedimento, il trasporto, l’ossigenazione, i processi chimici e l’erosione influenzano quanto rimane a disposizione dei paleontologi. Per questo la distribuzione geografica dei fossili non equivale esattamente alla distribuzione originaria delle specie.
I sedimenti fossiliferi possono essere datati attraverso relazioni stratigrafiche e, in presenza di materiali adatti, attraverso tecniche radiometriche applicate a rocce associate. Per esempio, minerali contenuti in livelli vulcanici possono fornire vincoli temporali ai fossili degli strati vicini. Spesso il fossile stesso non è direttamente datato e un valore numerico va letto come stima ancorata al contesto.
La preparazione di uno scheletro comprende documentazione del sito, consolidamento, rimozione controllata della matrice e analisi in laboratorio. La tomografia computerizzata consente di studiare strutture interne senza distruggere il reperto. Una ricerca riproducibile deve riportare collocazione museale, numero dell’esemplare, provenienza, anatomia descritta e confronti tassonomici.
Evoluzione, filogenesi e nomenclatura
Una classificazione filogenetica tenta di ricostruire i rapporti di parentela sulla base di caratteri condivisi e della loro storia evolutiva. Un clade comprende un antenato comune e tutti i suoi discendenti. Un albero filogenetico è quindi un’ipotesi sottoposta a revisione quando compaiono nuovi fossili, nuove misure o differenti interpretazioni anatomiche.
La tradizionale divisione tra Saurischia e Ornithischia è una sintesi didattica utile, ma le relazioni profonde dei grandi rami dei dinosauri hanno visto proposte alternative. In particolare, le posizioni relative di teropodi, sauropodomorfi e ornitischi non vanno presentate come definitivamente risolte in tutti i dettagli.
Il nome binomiale unisce genere e epiteto specifico, per esempio Tyrannosaurus rex. Il genere si scrive con iniziale maiuscola, l’epiteto minuscolo ed entrambi in corsivo. Un taxon può essere ritenuto valido, sinonimo di un altro, nomen dubium se non adeguatamente diagnosticabile, oppure essere oggetto di discussione. Le decisioni devono poggiare sulla letteratura specialistica e non su elenchi divulgativi non aggiornati.
Nomenclatura, sinonimia e validità delle specie
Il nome binomiale non garantisce da solo che una specie sia oggi considerata valida. Un nome può risultare un sinonimo successivo di un altro, essere fondato su resti troppo frammentari per una diagnosi attendibile oppure essere oggetto di una revisione filogenetica. La distinzione tra disponibilità nomenclaturale e validità tassonomica è essenziale: la prima riguarda il rispetto delle regole del codice, la seconda un’ipotesi scientifica sostenuta dalle evidenze.
Quando si compila un catalogo, per ogni specie servono almeno autore e anno della descrizione, reperto olotipo, località tipo, orizzonte geologico, diagnosi, principale riferimento originale e stato tassonomico con data della revisione. Una classificazione è un’ipotesi scientifica aggiornata nel tempo: il nome non deve essere eliminato senza lasciare traccia dei sinonimi e delle ragioni della modifica.
I grandi gruppi dei dinosauri
I Theropoda comprendono molti dinosauri bipedi, tradizionalmente noti come predatori, ma includono anche forme onnivore, erbivore e gli uccelli. Fra i raggruppamenti più noti si trovano Ceratosauria, Spinosauridae, Allosauroidea, Tyrannosauroidea e diversi cladi di coelurosauri. La loro evoluzione mostra un’ampia gamma di taglie, anatomie del cranio e specializzazioni alimentari.
I Sauropodomorpha comprendono forme triassiche relativamente piccole e i grandi sauropodi quadrupedi dal collo allungato, tra cui diplodocidi, brachiosauridi e titanosauri. Le dimensioni gigantesche non sono uniformi nel gruppo: alcuni taxa rimasero più contenuti e i rapporti di parentela variano tra i principali studi.
Gli Ornithischia comprendono fra gli altri stegosauri, anchilosauri, ceratopsi, pachicefalosauri e ornitopodi. Piastre, corazze, corna, cupole craniche e batterie dentarie non furono presenti in tutti gli ornitischi: sono innovazioni proprie di linee evolutive particolari.
Gli uccelli come dinosauri viventi
Il legame evolutivo fra gli uccelli e i teropodi è oggi sostenuto da convergenze scheletriche, fossili con piume, strutture riproduttive e un’ampia letteratura filogenetica. Gli uccelli non sono soltanto parenti dei dinosauri: costituiscono una loro linea sopravvissuta, annidata fra i teropodi. Questo fatto cambia il modo di leggere l’intera storia mesozoica.
Non tutti i piccoli dinosauri piumati potevano volare. Le piume precedettero probabilmente il volo aereo moderno in alcune linee e potevano avere funzioni di isolamento, segnalazione, protezione delle uova o comportamento. Le tappe che collegano arti anteriori terrestri ad ali funzionali comprendono una complessa sequenza di adattamenti e non una trasformazione lineare di una specie moderna da un antenato famoso.
Gli uccelli moderni conservano tratti di una storia evolutiva antichissima, ma sono anche il risultato di decine di milioni di anni di evoluzione dopo l’evento di fine Cretaceo. Un passero non è una copia miniaturizzata di un dromaeosauro: appartiene a una linea vivente altamente specializzata.
L’estinzione di fine Cretaceo
Intorno a 66 milioni di anni fa, l’impatto di un corpo extraterrestre nell’area dell’attuale penisola dello Yucatán produsse una grave perturbazione ambientale globale. Il cratere di Chicxulub, le anomalie geochimiche al limite Cretaceo–Paleogene e altri indicatori stratigrafici forniscono una solida base fisica per ricostruire l’evento.
Polveri e aerosol immessi nell’atmosfera alterarono la disponibilità di luce e il clima; la riduzione della produttività primaria compromise reti alimentari terrestri e marine. Il vulcanismo dei Trappi del Deccan, già attivo nella stessa epoca, è oggetto di studio per il suo possibile contributo alle perturbazioni ambientali, ma non elimina il ruolo centrale dell’impatto nella crisi di fine Cretaceo.
L’estinzione non fu limitata ai dinosauri non aviani: interessò molti altri organismi. La sopravvivenza di alcune linee di uccelli e mammiferi fu seguita da una diversificazione nel Cenozoico. La scomparsa dei dinosauri non aviani non va spiegata come prova di inferiorità evolutiva: era una catastrofe che modificò bruscamente le condizioni ecologiche.
Atlante introduttivo delle specie
Le schede presentano dinosauri di epoche e gruppi differenti, mettendo in relazione classificazione, provenienza e caratteri anatomici. Cronologie ampie e descrizioni qualitative riflettono la precisione consentita dai reperti: una ricostruzione di massa richiede invece un campione e un metodo specifici.
Eoraptor lunensis
| Gruppo | Dinosauria basale (posizione discussa) |
|---|---|
| Epoca e provenienza | Triassico superiore · Argentina |
Piccolo dinosauro bipede noto da Ischigualasto; esemplifica la diversità anatomica dei primi dinosauri e la difficoltà di stabilire i confini fra grandi linee precoci.
Herrerasaurus ischigualastensis
| Gruppo | Dinosauria basale, affinità teropodi discusse |
|---|---|
| Epoca e provenienza | Triassico superiore · Argentina |
Predatore bipede con robusti arti posteriori; importante per lo studio dell’origine della carnivoria e delle prime radiazioni dinosauriane.
Coelophysis bauri
| Gruppo | Theropoda · Coelophysoidea |
|---|---|
| Epoca e provenienza | Triassico superiore · Nord America |
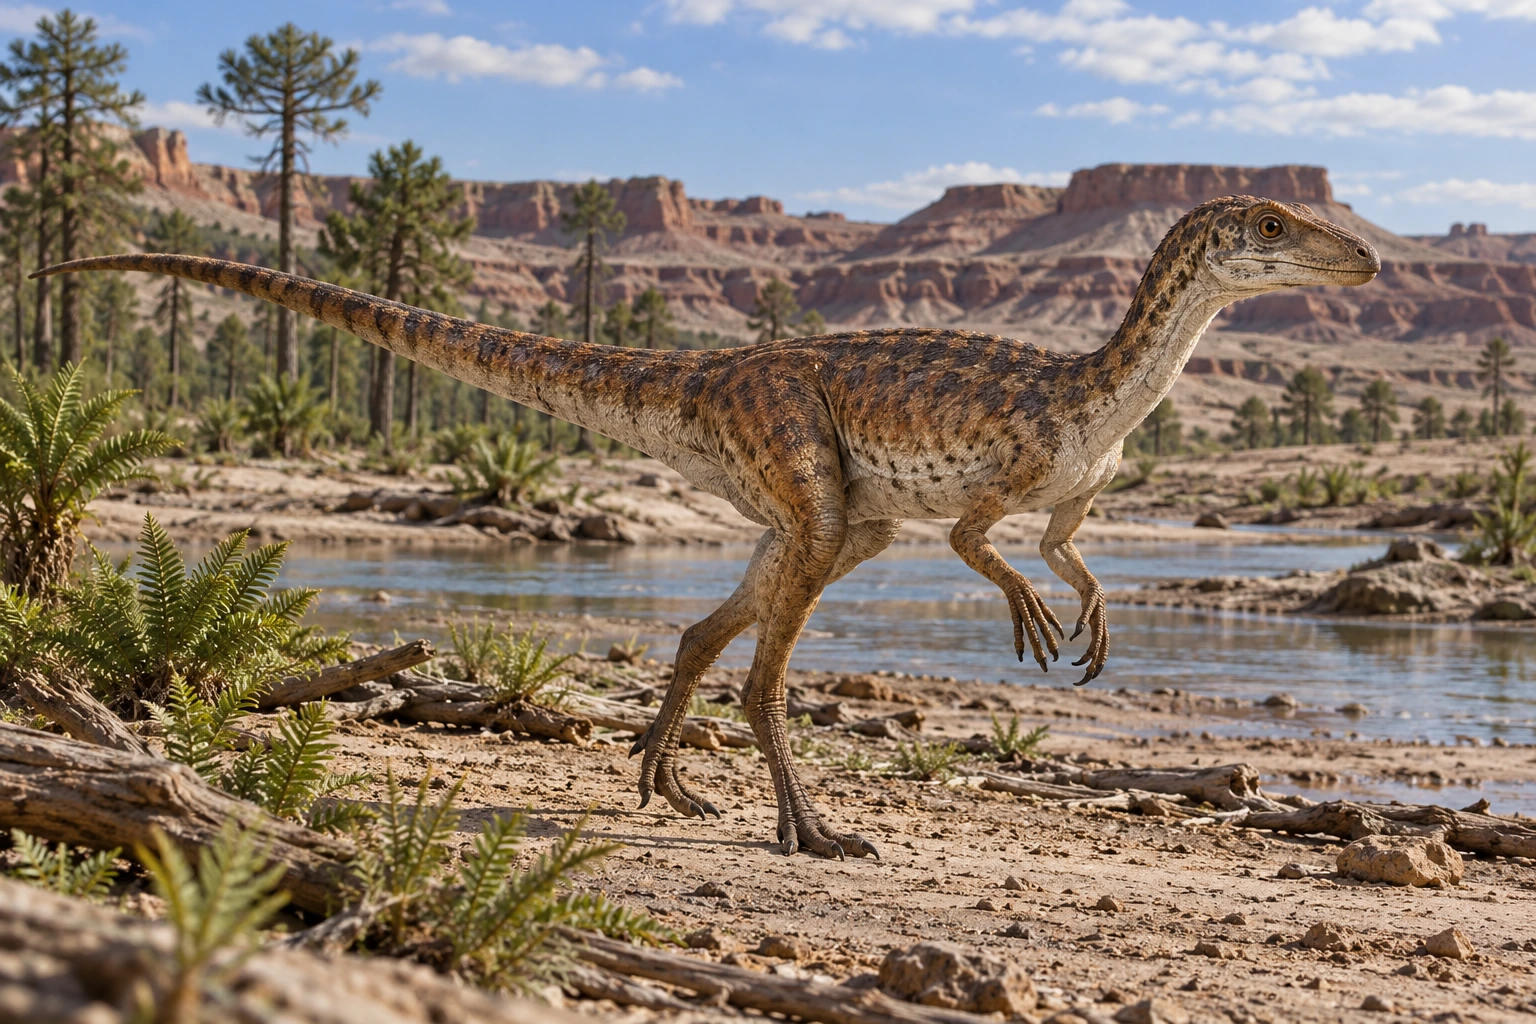
Teropode gracile, con muso allungato e arti posteriori adattati alla locomozione bipede; celebre per i numerosi reperti.
Plateosaurus engelhardti
| Gruppo | Sauropodomorpha basale |
|---|---|
| Epoca e provenienza | Triassico superiore · Europa |
Erbivoro dal collo allungato con grande variabilità corporea; centrale per comprendere l’evoluzione antecedente ai sauropodi giganti.
Dilophosaurus wetherilli
| Gruppo | Theropoda |
|---|---|
| Epoca e provenienza | Giurassico inferiore · Nord America |
Teropode con due creste craniche; la celebre rappresentazione con collare espandibile e veleno non è sostenuta dalle evidenze fossili.
Scelidosaurus harrisonii
| Gruppo | Thyreophora |
|---|---|
| Epoca e provenienza | Giurassico inferiore · Europa |
Dinosauro erbivoro corazzato che contribuisce a documentare le fasi precoci dell’evoluzione delle armature dermiche.
Megalosaurus bucklandii
| Gruppo | Theropoda · Megalosauridae |
|---|---|
| Epoca e provenienza | Giurassico medio · Europa |
Tra i primi dinosauri a ricevere un nome scientifico; teropode importante nella storia della paleontologia.
Cetiosaurus oxoniensis
| Gruppo | Sauropoda |
|---|---|
| Epoca e provenienza | Giurassico medio · Europa |
Sauropode storico europeo la cui interpretazione contribuì all’identificazione dei grandi dinosauri quadrupedi.
Allosaurus fragilis
| Gruppo | Theropoda · Allosauroidea |
|---|---|
| Epoca e provenienza | Giurassico superiore · Nord America |
Grande predatore della Formazione Morrison; denti seghettati, cranio profondo e arti anteriori funzionali.
Ceratosaurus nasicornis
| Gruppo | Theropoda · Ceratosauria |
|---|---|
| Epoca e provenienza | Giurassico superiore · Nord America |
Teropode con prominenza nasale ossea e anatomia cranica distinta da quella degli allosauridi.
Stegosaurus stenops
| Gruppo | Ornithischia · Stegosauria |
|---|---|
| Epoca e provenienza | Giurassico superiore · Nord America |
Erbivoro quadrupede con grandi piastre dorsali e spine caudali; funzione delle piastre oggetto di interpretazioni molteplici.
Diplodocus carnegii
| Gruppo | Sauropoda · Diplodocidae |
|---|---|
| Epoca e provenienza | Giurassico superiore · Nord America |
Sauropode dal corpo allungato, collo e coda molto lunghi e dentizione specializzata nella raccolta della vegetazione.
Apatosaurus louisae
| Gruppo | Sauropoda · Diplodocidae |
|---|---|
| Epoca e provenienza | Giurassico superiore · Nord America |
Sauropode robusto con collo potente; spesso confuso nella divulgazione con Brontosaurus, la cui tassonomia ha avuto una storia complessa.
Brachiosaurus altithorax
| Gruppo | Sauropoda · Brachiosauridae |
|---|---|
| Epoca e provenienza | Giurassico superiore · Nord America |
Sauropode con arti anteriori relativamente lunghi; non va confuso con Giraffatitan brancai africano, storicamente assegnato a Brachiosaurus.
Archaeopteryx lithographica
| Gruppo | Avialae (posizione e delimitazione tassonomica discusse) |
|---|---|
| Epoca e provenienza | Giurassico superiore · Europa |
Forma piumata con ali, denti e lunga coda ossea; fossile fondamentale nella ricostruzione dell’origine degli uccelli.
Iguanodon bernissartensis
| Gruppo | Ornithischia · Iguanodontia |
|---|---|
| Epoca e provenienza | Cretaceo inferiore · Europa |
Grande ornitopode con caratteristico pollice appuntito e dentizione erbivora; celebre per i ritrovamenti di Bernissart.
Baryonyx walkeri
| Gruppo | Theropoda · Spinosauridae |
|---|---|
| Epoca e provenienza | Cretaceo inferiore · Europa |
Spinosauride con muso allungato e artiglio prominente della mano; evidenze anatomiche associate a sfruttamento di risorse acquatiche.
Deinonychus antirrhopus
| Gruppo | Theropoda · Dromaeosauridae |
|---|---|
| Epoca e provenienza | Cretaceo inferiore · Nord America |
Dromaeosauride con grande artiglio falciforme del secondo dito del piede; determinante per il rinnovamento delle concezioni sui dinosauri.
Psittacosaurus mongoliensis
| Gruppo | Ornithischia · Ceratopsia |
|---|---|
| Epoca e provenienza | Cretaceo inferiore · Asia |
Ceratopsio basale con becco robusto e corpo relativamente piccolo; diversi reperti documentano la pelle e lo sviluppo.
Microraptor gui
| Gruppo | Theropoda · Dromaeosauridae |
|---|---|
| Epoca e provenienza | Cretaceo inferiore · Asia |
Piccolo dinosauro piumato con superfici aerodinamiche associate anche agli arti posteriori; centrale nello studio dell’origine del volo.
Spinosaurus aegyptiacus
| Gruppo | Theropoda · Spinosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord Africa |
Teropode con grandi spine neurali dorsali e anatomia specializzata; stile locomotorio e grado di adattamento all’acqua restano dibattuti.
Carcharodontosaurus saharicus
| Gruppo | Theropoda · Carcharodontosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord Africa |
Grande predatore noto da materiale cranico e postcranico; uno dei principali teropodi degli ecosistemi cretacei nordafricani.
Giganotosaurus carolinii
| Gruppo | Theropoda · Carcharodontosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Sud America |
Grande teropode sudamericano, distinto dai tirannosauridi nordamericani e asiatici nonostante la convergenza nella taglia.
Argentinosaurus huinculensis
| Gruppo | Sauropoda · Titanosauria |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Sud America |
Titanosauro gigantesco conosciuto da resti incompleti; le dimensioni pubblicate dipendono da ricostruzioni e confronti anatomici.
Patagotitan mayorum
| Gruppo | Sauropoda · Titanosauria |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Sud America |
Grande titanosauro documentato da più individui e importanti elementi scheletrici; stime della massa variabili secondo il metodo.
Ankylosaurus magniventris
| Gruppo | Ornithischia · Ankylosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord America |
Erbivoro quadrupede protetto da osteodermi e con mazza caudale: esempio di specializzazione difensiva.
Edmontosaurus annectens
| Gruppo | Ornithischia · Hadrosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord America |
Grande hadrosauride con becco e batterie dentarie, caratteristico degli ecosistemi di fine Cretaceo.
Parasaurolophus walkeri
| Gruppo | Ornithischia · Hadrosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord America |
Hadrosauride dotato di lunga cresta tubolare: le ipotesi funzionali comprendono comunicazione sonora e riconoscimento.
Pachycephalosaurus wyomingensis
| Gruppo | Ornithischia · Pachycephalosauria |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord America |
Noto per la spessa cupola cranica; l’eventuale impiego in combattimenti fra individui è una questione biomeccanica discussa.
Triceratops horridus
| Gruppo | Ornithischia · Ceratopsidae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord America |
Grande erbivoro con tre corna e collare osseo; ben rappresentato negli strati terminali del Cretaceo nordamericano.
Tyrannosaurus rex
| Gruppo | Theropoda · Tyrannosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Nord America |
Grande teropode con cranio robusto, potenti mascelle e arti anteriori ridotti; la sua biologia è ricostruita da un importante campione fossile.
Velociraptor mongoliensis
| Gruppo | Theropoda · Dromaeosauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Asia |
Dromaeosauride relativamente piccolo, con caratteristiche da predatore attivo; assai diverso dalle dimensioni delle rappresentazioni cinematografiche.
Oviraptor philoceratops
| Gruppo | Theropoda · Oviraptorosauria |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Asia |
Teropode dal becco privo di denti; il nome storico, collegato a un’erronea interpretazione delle uova, non descrive affidabilmente la dieta.
Therizinosaurus cheloniformis
| Gruppo | Theropoda · Therizinosauria |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Asia |
Teropode caratterizzato da enormi unguali manuali; membro di un gruppo con marcate specializzazioni e dieta probabilmente prevalentemente vegetale.
Carnotaurus sastrei
| Gruppo | Theropoda · Abelisauridae |
|---|---|
| Epoca e provenienza | Cretaceo superiore · Sud America |
Teropode con due corna sopra gli occhi e arti anteriori fortemente ridotti; conserva importanti impressioni cutanee.